

Potentiel antioxydant et anti-vieillissement cutané de plantes thaïlandaises sélectionnées : évaluation in vitro et prédiction de cible in silico, partie 2
Jul 06, 2023
3. Débat
Le vieillissement cutané est un processus naturel chez tous les êtres humains. Cependant, de nombreux modes de vie et facteurs environnementaux peuvent également accélérer ce processus conduisant à un vieillissement prématuré de la peau [19]. Les ROS sont bien connus comme un facteur pathogène important dans le processus de vieillissement de la peau. L'accumulation de ROS peut réguler à la hausse l'expression des enzymes élastase et tyrosinase, ce qui conduit ensuite à la formation de rides, au manque d'élasticité et à l'hyperpigmentation [20-22]. Toutes ces caractéristiques sont communes au vieillissement cutané [4]. Ici, notre étude a étudié les propriétés antioxydantes, anti-élastase et anti-tyrosinase d'extraits de plantes de 16 espèces de plantes thaïlandaises et a révélé des composés naturels prometteurs pour le développement potentiel de nouveaux traitements contre le vieillissement cutané.
Le glycoside de cistanche peut également augmenter l'activité de la SOD dans les tissus cardiaques et hépatiques et réduire considérablement la teneur en lipofuscine et en MDA dans chaque tissu, piégeant efficacement divers radicaux réactifs de l'oxygène (OH-, H₂O₂, etc.) et protégeant contre les dommages à l'ADN causés par des radicaux OH. Les glycosides phényléthanoïdes de Cistanche ont une capacité de piégeage robuste des radicaux libres, une capacité de réduction supérieure à celle de la vitamine C, améliorent l'activité de la SOD dans la suspension de sperme, réduisent la teneur en MDA et ont un certain effet protecteur sur la fonction de la membrane du sperme. Les polysaccharides Cistanche peuvent améliorer l'activité de la SOD et du GSH-Px dans les érythrocytes et les tissus pulmonaires de souris sénescentes expérimentalement causées par le D-galactose, ainsi que réduire la teneur en MDA et en collagène dans les poumons et le plasma et augmenter la teneur en élastine, ont un bon effet de piégeage sur le DPPH, prolonge le temps d'hypoxie chez les souris sénescentes, améliore l'activité de la SOD dans le sérum et retarde la dégénérescence physiologique du poumon chez les souris expérimentalement sénescentes Avec la dégénérescence morphologique cellulaire, des expériences ont montré que Cistanche a la bonne capacité antioxydante et a le potentiel d'être un médicament pour prévenir et traiter les maladies du vieillissement cutané. Dans le même temps, l'échinacoside contenu dans Cistanche a une capacité significative à piéger les radicaux libres DPPH et peut piéger les espèces réactives de l'oxygène, empêcher la dégradation du collagène induite par les radicaux libres et a également un bon effet réparateur sur les dommages causés par les anions des radicaux libres thymine.
Cliquez sur supplément cistanche tubulosa
【Pour plus d'informations :george.deng@wecistanche.com / WhatApp :86 13632399501】
L'élastase est une enzyme protéase qui est principalement responsable de la dégradation de l'élastine, une protéine importante présente dans la MEC. L'élastine est essentielle pour donner de l'élasticité à la peau en raison de ses propriétés de recul élastique [13]. Par conséquent, l'inhibition de l'activité de l'élastase peut aider à prévenir la perte d'élasticité de la peau et les rides [23]. Notre résultat a révélé que A. occidentale était l'inhibiteur d'élastase le plus puissant, suivi de G. zeylanicum et S. alata, dans l'ordre des valeurs IC50. De plus, les résultats d'amarrage ont révélé que cinq composés dérivés de ces trois plantes avaient des énergies de liaison inférieures à celles de l'EGCG (témoin positif) et du FRW (inhibiteur d'origine), les composés présentant l'énergie de liaison la plus faible étant considérés comme ayant une meilleure inhibition (tableau S4) [ 24]. Ces composés sont des flavonoïdes, qui comprennent un tétramère de proanthocyanidine [25], amentoflavone [25], rutine [26,27], agathisflavone [26] de A. occidentale et kaempférol 3- O-gentiobioside de S. alata [28] (Tableau S3). Les résultats suggèrent que les cinq composés sont responsables de l'activité anti-élastase et peuvent être considérés comme des candidats prometteurs pour le développement de l'anti-vieillissement cutané. Cependant, nous avons constaté qu'aucun des composés de G. zeylanicum ne présentait une forte affinité de liaison par rapport aux ligands témoins, bien que son extrait ait montré la deuxième activité la plus importante par test in vitro. Cela peut être dû à l'effet synergique des composés dans le mélange plutôt qu'à l'effet individuel de chaque composant phytochimique.
En plus de l'élastase, la mélanine est considérée comme une autre cible importante pour le traitement du vieillissement cutané. La mélanine est un composant majeur de la couleur de la peau, des cheveux et des yeux synthétisée par la mélanogenèse au sein du mélanocyte. Cependant, la surproduction de mélanine peut provoquer des troubles cutanés, notamment des taches de rousseur, du mélasma, des taches de vieillesse et une hyperpigmentation, entraînant un vieillissement prématuré [12]. Dans la mélanogénèse, la tyrosinase est l'enzyme critique dans l'étape limitant la vitesse. Par conséquent, la régulation à la baisse de l'activité de la tyrosinase peut entraîner une réduction de la production de mélanine [29]. Nos résultats ont montré que G. zeylanicum était l'inhibiteur de tyrosinase le plus puissant, suivi par A. catechu et A. occidentale, selon les valeurs IC50. Étonnamment, la plupart des composés (47 composés sur 48) de ces trois plantes ont montré une énergie de liaison plus faible contre la tyrosinase que le KA (témoin positif) et la tropolone (inhibiteur d'origine) (tableau S5). Parmi les 47 composés, 16 étaient dérivés de G. zeylanicum, 12 étaient dérivés d'A. catechu et 29 étaient dérivés d'A. occidentale, dont 10 d'entre eux peuvent être trouvés dans plus d'une plante (tableau S3). Cependant, contrairement à la liaison du composé avec l'élastase, les composés potentiels identifiés contre la tyrosinase proviennent d'une variété de classes phytochimiques. En ce qui concerne le rang des énergies de liaison à la tyrosinase, les composés considérés comme les cinq meilleurs inhibiteurs sont l'acide o-coumarique [30] (phénolique), un tétramère de proanthocyanidine [25] (flavonoïde), l'acide caféique [30] (phénolique), l'acide férulique [30] (phénolique), et le tanin d'arec A1 [31] (tanin), dans l'ordre croissant des scores (Tableau S5). Les résultats obtenus à partir du criblage in vitro et de l'analyse d'amarrage dans cette étude ont confirmé les propriétés anti-vieillissement de la peau de quatre plantes médicinales thaïlandaises et ont suggéré leurs composés dérivés potentiels qui pourraient être responsables des activités observées. D'autres études sur le fractionnement, ainsi que l'identification et l'isolement de composés bioactifs dans ces extraits de plantes prometteurs, sont indispensables pour prouver la présence de nos molécules proposées qui pourraient ensuite être développées pour le traitement du vieillissement cutané [14].
A. catechu, A. occidentale, G. zeylanicum et S. alata sont des plantes utilisées en médecine traditionnelle et trouvées dans la zone tropicale de l'Asie du Sud-Est, y compris la Thaïlande [32–36]. Notamment, ces plantes ont été démontrées pour plusieurs activités liées aux antioxydants. Le fruit d'A. catechu est un produit à mâcher populaire avec des feuilles de bétel, qui est enivrant et légèrement addictif [36]. Il est utilisé pour le traitement des brûlures et des ulcères cutanés et agit comme astringent [35,37]. Il a été rapporté pour ses puissants effets antioxydants et anti-inflammatoires contre les lésions hépatiques induites par le stress oxydatif chez le rat [38]. A. occidentale et G. zeylanicum, appartenant au sud de la Thaïlande, sont utilisées comme plante alimentaire et médicinale locale [32,33]. Les feuilles d'A. occidentale sont utilisées pour traiter les éruptions cutanées, les démangeaisons, les ulcères et la fièvre, tandis que les feuilles de G. zeylanicum sont utilisées pour traiter la polyarthrite rhumatoïde, la grippe, la dysenterie et la dyspepsie [32,33,39]. Les extraits de feuilles d'A. occidentale et de G. zeylanicum ont montré des effets neuroprotecteurs contre le glutamate et les dommages oxydatifs induits par H2O2- [32,40]. De plus, l'extrait brut des feuilles des deux plantes a exercé un stress antioxydant et des propriétés anti-vieillissement chez le nématode Caenorhabditis elegans [33,41,42]. Les feuilles de S. alata sont utilisées pour le traitement des éruptions cutanées, des mycoses et des dermatites [34]. L'extrait de feuilles de cette plante a été capable d'augmenter les systèmes antioxydants enzymatiques et non enzymatiques et de prévenir les dommages aux tissus hépatiques et rénaux causés par le stress oxydatif pendant le diabète dans un modèle de rat [43].
En accord avec les rapports précédents, nos résultats révèlent que A. catechu, A. occidentale, G. zeylanicum et S. alata présentent un potentiel antioxydant, en plus des activités sur les enzymes liées au vieillissement cutané. Nous avons constaté que ces plantes sont riches en composés phénoliques totaux et en flavonoïdes avec des capacités antioxydantes élevées vis-à-vis des radicaux DPPH et ABTS, à l'exception de S. alata, qui n'a montré qu'un niveau modéré en quantités et en activités. Les composés phénoliques et les flavonoïdes sont deux classes bien connues de métabolites secondaires végétaux qui sont principalement responsables de l'activité antioxydante [44,45]. Cela était cohérent avec nos résultats selon lesquels les teneurs totales en phénols et en flavonoïdes démontraient une corrélation positive significative avec les activités de piégeage des radicaux libres (Figure S1). Fait intéressant, l'analyse de corrélation a également révélé que la teneur en composés phénoliques et flavonoïdes totaux dans les extraits de plantes étudiés était positivement corrélée à l'inhibition de l'élastase et de la tyrosinase. Cependant, la force de corrélation s'est avérée plus élevée avec les composés phénoliques qu'avec les flavonoïdes. Il a été démontré que les activités de piégeage des radicaux libres avaient une forte corrélation avec les activités inhibitrices d'enzymes des extraits. Ces résultats suggèrent qu'un contenu phénolique élevé et une activité antioxydante peuvent conduire à une forte inhibition des enzymes élastase et tyrosinase. Cependant, la possibilité d'interactions protéine-polyphénol devrait également être une préoccupation. Certains polyphénols pourraient directement provoquer une précipitation enzymatique via leur capacité à se lier aux protéines riches en proline, entraînant la formation de liaisons hydrogène avec l'enzyme et conduisant ainsi à une inhibition non sélective [46].
4. Matériels et méthodes
4.1. Produits chimiques et réactifs
Réactif phénol de Folin–Ciocalteu, chlorure d'aluminium (AlCl3), diméthylsulfoxyde (DMSO), acétate de sodium (NaOAc), quercétine, 2,2-diphényl-1-picrylhydrazyl (DPPH), 2,{{5} } acide azinobis-(3-éthylbenzthiazoline-6-sulfonique) (ABTS), acide L-ascorbique, persulfate de potassium (K2S2O8), élastase de pancréas porcin, gallate d'épigallocatéchine (EGCG), Nsuccinyl-Ala-Ala- L'Ala-p-nitroanilide (SANA), la tyrosinase de champignon, l'acide kojique (KA) et la 3,4-dihydroxy-L-phénylalanine (L-DOPA) ont été achetés chez Sigma-Aldrich (St. Louis, MO, ETATS-UNIS). Le carbonate de sodium (Na2CO3) a été acheté chez Merck (Darmstadt, Allemagne). L'acide gallique a été acheté auprès de TCI America (Portland, OR, USA). Le phosphate dipotassique (K2HPO4) et le phosphate de potassium monobasique (KH2PO4) ont été achetés chez HiMedia (Mumbai, Inde). La base Tris a été achetée auprès de Vivantis Technologies (Shah Alam, Malaisie). L'éthanol et le méthanol ont été achetés chez RCI Labscan (Bangkok, Thaïlande). Tous les produits chimiques et réactifs étaient de qualité analytique.
4.2. Matières végétales et extraction
Les plantes de cette étude ont été récoltées localement dans des jardins ou achetées sur des marchés locaux, selon le cas. Le tableau 1 fournit le nom scientifique, la partie utilisée et la source de chaque plante. Ces plantes ont été botaniquement authentifiées et leurs spécimens de référence ont été déposés dans l'herbier de Kasin Suvatabhandhu, Département de botanique, Faculté des sciences, Université Chulalongkorn, Bangkok, Thaïlande, ou identifiés par un botaniste. Les matières végétales ont été lavées, séchées à 65 ◦C et broyées finement dans un broyeur mécanique. L'extraction de la plante séchée (40 g) a été réalisée par extraction Soxhlet ou méthode de macération en utilisant 400 mL d'éthanol ou de méthanol. Les extraits ont été filtrés et évaporés à sec sous vide. Ensuite, les résidus séchés ont été dissous dans du DMSO sous forme de solution mère à 100 mg/mL et stockés à -20 °C pour une étude plus approfondie.
4.3. Détermination du contenu phénolique total
Le contenu phénolique total a été réalisé selon la méthode de Folin-Ciocalteu [47]. En bref, 50 µL d'extraits à 1 mg/mL dans de l'eau déminéralisée ont été mélangés à 50 µL de réactif phénol de Folin-Ciocalteu à 10 % (p/v) dans une plaque 96-puits et incubés dans l'obscurité à température ambiante ( TA) pendant 20 min. Après l'incubation, 50 µL de Na2CO3 à 7,5 % (p/v) ont été ajoutés au mélange et incubés pendant 20 minutes supplémentaires. L'absorbance a été mesurée avec un lecteur de microplaques à 760 nm. La teneur phénolique totale a été calculée à partir d'une courbe d'étalonnage standard utilisant de l'acide gallique de 1,56 à 100 µg/mL, et les résultats sont présentés en mg d'équivalent d'acide gallique (GAE) par g d'extrait sec.
4.4. Détermination de la teneur totale en flavonoïdes
La teneur totale en flavonoïdes a été réalisée à l'aide de chlorure d'aluminium (AlCl3) [47]. En bref, 50 µL d'extraits à 1 mg/mL dans de l'eau déminéralisée ont été complétés à 200 µL avec de l'éthanol à 95 %, puis 10 µL d'AlCl3 à 10 % et 10 µL de NaOAc 1 M ont été ajoutés à un puits 96- plaque. La plaque a été incubée dans l'obscurité à température ambiante pendant 40 min et l'absorbance a été mesurée avec un lecteur de microplaques à 415 nm. La teneur totale en flavonoïdes a été calculée à partir d'une courbe d'étalonnage standard utilisant de la quercétine de 1,56 à 100 µg/mL, et les résultats ont été exprimés en mg d'équivalent de quercétine (QE) par g d'extrait de poids sec.
4.5. Détermination de l'activité de piégeage des radicaux DPPH
Le dosage de l'activité de piégeage des radicaux DPPH a été effectué comme décrit précédemment [47]. Le réactif de travail DPPH• a été préparé par DPPH dissous dans de l'éthanol absolu. En bref, 180 µL de solution de travail DPPH• ont été mélangés avec 20 µL d'extraits dans une plaque à puits 96- et ont été incubés dans l'obscurité à température ambiante pendant 15 min, et l'absorbance a été mesurée avec un lecteur de microplaques à 517 nm. L'acide ascorbique de 1,56 à 100 µg/mL a servi d'étalon. L'activité de piégeage des radicaux a été calculée comme le pourcentage d'inhibition des radicaux libres en utilisant l'équation suivante :
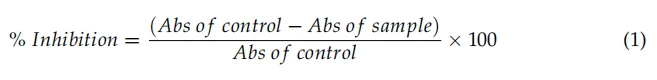
Les pourcentages d'activité de piégeage du DPPH de chaque extrait de plante ont été comparés à ceux de l'acide ascorbique. Les résultats ont été exprimés en mg de capacité antioxydante équivalente en vitamine C (VCEAC) par g d'extrait de poids sec. L'IC50 (concentration inhibitrice semi-maximale) a été déterminée à partir du graphique du pourcentage d'inhibition par rapport à la concentration de chaque extrait.
4.6. Détermination de l'activité de piégeage des radicaux ABTS
Le test d'activité de piégeage des radicaux ABTS a été effectué comme décrit précédemment [47]. Le réactif de travail ABTS• plus a été préparé en mélangeant 7 mM d'ABTS• et 2,45 mM de K2S2O8 dans un rapport de 1:1, et le mélange a dû rester pendant 16 à 18 h dans l'obscurité à température ambiante. La solution de travail ABTS• plus a été diluée avec de l'éthanol absolu pour que l'absorbance atteigne entre 0.7 et 0.8 à 734 nm. En bref, 180 µL de solution de travail ABTS• plus ont été mélangés avec 20 µL d'extraits dans une plaque à puits 96- et ont été incubés dans l'obscurité à température ambiante pendant 30 min, et l'absorbance a été mesurée avec un lecteur de microplaques à 734 nm. L'acide ascorbique de 1,56 à 100 µg/mL a servi d'étalon. L'activité de piégeage des radicaux a été calculée comme le pourcentage d'inhibition des radicaux libres en utilisant l'équation (1).

Les pourcentages d'activité de piégeage de l'ABTS de chaque extrait de plante ont été comparés à ceux de l'acide ascorbique. Les résultats sont exprimés en mg de capacité antioxydante équivalente en vitamine C (VCEAC) par g d'extrait de poids sec. L'IC50 a été déterminée à partir du graphique du pourcentage d'inhibition par rapport à la concentration de chaque extrait.
4.7. Détermination de l'activité anti-élastase
L'activité anti-élastase a été évaluée par le test d'inhibition de l'élastase en utilisant le protocole modifié [13, 48, 49]. En bref, 20 µL d'extraits, 10 µL de 0.4 U/mL d'élastase porcine pancréatique (EPI) et 140 µL de tampon Tris-HCL 0,1 M à pH 8,0 ont été ajoutés dans une plaque à puits 96- et pré-incubés à température ambiante pendant 20 min. Après incubation, 30 µL de SANA 2 mM ont été ajoutés au mélange réactionnel et encore incubés pendant 30 min à température ambiante. L'absorbance a été mesurée avec un lecteur de microplaques à 734 nm. L'EGCG a été utilisé pour servir de témoin positif pour l'inhibition. Le contrôle négatif contenait 100 % de DMSO au lieu des extraits. Le pourcentage d'inhibition de l'activité de l'élastase a été calculé en utilisant l'équation (1). La CI50 a été déterminée à partir du graphique du pourcentage d'inhibition de l'élastase par rapport à une concentration de chaque extrait.
4.8. Détermination de l'activité anti-tyrosinase
L'activité anti-tyrosinase a été réalisée en utilisant la méthode du dopachrome avec quelques modifications [8]. En bref, 20 µL d'extraits, 20 µL de 200 U/mL de tyrosinase de champignon et 140 µL de tampon phosphate 0,1 M à pH 6,8 ont été ajoutés dans des plaques 96-puits et pré-incubés à température ambiante pendant 20 min. Après incubation, 40 µL de L-DOPA 2,5 mM ont été ajoutés au mélange réactionnel et encore incubés pendant 20 min à température ambiante. L'absorbance a été lue avec un lecteur de microplaques à 492 nm. KA a été utilisé pour servir de témoin positif pour l'inhibition. Le contrôle négatif contenait 100 % de DMSO au lieu des extraits. Le pourcentage d'inhibition de l'activité tyrosinase a été calculé en utilisant l'équation (1). La CI50 a été déterminée à partir du graphique du pourcentage d'inhibition de la tyrosinase par rapport à une concentration de chaque extrait.
4.9. Amarrage moléculaire
4.9.1. Préparation des ligands
Une liste de composés phytochimiques des trois plantes les plus efficaces avec une forte inhibition contre l'élastase ou la tyrosinase a été sélectionnée dans la littérature publiée [25–28,30–32,42,50–61] (tableau S3). Toutes les structures chimiques des composés ont été générées à partir du nom IUPAC à l'aide de BIOVIA Draw 2019 (BIOVIA, San Diego, CA, USA). Ensuite, la géométrie des composés a été nettoyée et le fichier a été enregistré au format pdb à l'aide de Discovery Studio Visualizer (BIOVIA, San Diego, CA, USA). Ces fichiers ont été convertis au format pdbqt à l'aide du logiciel AutoDockTools-1.5.6 (The Scripps Research Institute, San Diego, CA, USA).
4.9.2. Préparation de protéines
Les structures cristallographiques aux rayons X de l'élastase (PDB ID : 3HGP) [62] et de la tyrosinase (PDB ID : 2Y9X) [63] ont été obtenues auprès de la RCSB Protein Data Bank. Avant l'étude d'amarrage, à l'aide de Discovery Studio Visualizer, les molécules d'eau et l'inhibiteur d'origine ont été retirés de la structure protéique, à l'exclusion de Cu2 plus dans les structures de la tyrosinase. Ces structures protéiques ont été préparées à l'aide de la configuration protéique préparée dans le logiciel AutoDockTools-1.5.6. Tous les hydrogènes manquants et les charges de Kollman ont été ajoutés à la structure protéique et enregistrés dans le fichier au format pdbqt pour l'étude d'amarrage.
4.9.3. Amarrage moléculaire
Des études d'amarrage moléculaire ont été réalisées à l'aide du protocole par défaut du logiciel AutoDockTools{{0}}.5.6. Les sites de grille ont été définis avec un espacement de 0,375 Å. Les dimensions x–y–z ont été fixées à 40 × 40 × 40 points pour l'élastase et 60 × 60 × 60 points pour la tyrosinase. La case de la grille des centres x, y et z était de 12,58, 9,36 et 2,251 pour l'élastase et de -10,044, -28,706 et -43,443 pour la tyrosinase. L'étude d'amarrage a été réalisée à l'aide de l'algorithme génétique lamarckien (GA) avec des paramètres par défaut, et les résultats d'amarrage ont été analysés à l'aide du logiciel AutoDockTools-1.5.6 et de Discovery Studio Visualizer.
4.10. Analyses statistiques
Toutes les expériences ont été réalisées au moins en trois exemplaires, et les résultats ont été représentés par la moyenne ± écart type (SD). Les valeurs IC50 ont été analysées à l'aide du logiciel SigmaPlot version 12.0. La corrélation entre les différentes variables a été exprimée sous forme de coefficients de corrélation de Pearson (r). La corrélation a été déterminée à l'aide de GraphPad Prism (GraphPad Software Inc., San Diego, Californie, États-Unis) et les résultats ont été considérés comme statistiquement significatifs lorsque p était inférieur à 0,05 (p < 0,05).
5. Conclusions
En résumé, nos découvertes ont révélé quatre plantes médicinales thaïlandaises qui contiennent des composés candidats prometteurs pour le développement en tant qu'agents anti-vieillissement de la peau. Les extraits de feuilles d'A. occidentale et de G. zeylanicum ont démontré une forte action inhibitrice contre les enzymes élastase et tyrosinase, tandis que les extraits de feuille de S. alata et de fruit d'A. catechu ont montré leur activité plus fortement uniquement vis-à-vis de l'élastase ou de la tyrosinase, respectivement. Plusieurs composés dérivés de ces plantes ont également été confirmés pour leurs capacités à se lier aux deux enzymes grâce à une étude d'amarrage moléculaire. De plus, la feuille de G. zeylanicum, la feuille d'A. occidentale et le fruit d'A. catechu possèdent un potentiel antioxydant important contre les radicaux libres avec de grandes quantités de composés phénoliques et de flavonoïdes. Pris ensemble, le fruit d'A. catechu, la feuille d'A. occidentale, la feuille de G. zeylanicum et la feuille de S. alata sont identifiées comme des sources naturelles d'antioxydants, d'anti-élastase et d'anti-tyrosinase, qui sont considérées comme potentiellement utiles pour le traitement contre le vieillissement de la peau.
Contributions d'auteur:Conceptualisation, AP ; Enquête et analyse formelle, KC, SC (Sawarin Chumpolphant), PR et CS ; Validation, RP et AP ; Visualisation, KC et SC (Sawarin Chumpolphant) ; Rédaction — Préparation du brouillon original, KC, SC (Sawarin Chumpolphant), PR, CS et AP ; Rédaction - Révision et édition, KC, SC (Sawarin Chumpolphant), PR, CS, SC (Siriporn Chuchawankul), TT et AP ; Supervision, TT et AP ; Logiciels, SC (Siriporn Chuchawankul) et TT ; Ressources, TT et AP ; Acquisition de financement, AP Tous les auteurs ont lu et accepté la version publiée du manuscrit.
Financement: Cette recherche a été soutenue financièrement par le Thailand Science Research and Innovation Fund Chulalongkorn University (CU_FRB65_hea (91)_198_53_01) et le Bureau du secrétaire permanent du ministère de Enseignement supérieur, science, recherche et innovation (bourse n° RGNS 63- 003). KC tient également à remercier le 90e anniversaire du Fonds de l'Université Chulalongkorn (Fonds de dotation Ratchadaphiseksomphot).
Déclaration de disponibilité des données :N'est pas applicable.

Remerciements: Les auteurs remercient Maneewan Suwatronnakorn, Somchai Issaravanich et Chatrawee Duangjan pour leur aimable aide dans la préparation des extraits de plantes. Nous sommes également reconnaissants à Nijsiri Ruangrungsi et Chanida Palanuvej pour leur aide à l'identification des plantes et Dicson Sheeja Malar pour leur aide à l'édition anglaise du manuscrit. AP est reconnaissant aux subventions pour le développement du nouveau personnel enseignant, Fonds de dotation Ratchadaphiseksomphot, Université Chulalongkorn.
Les conflits d'intérêts:Les auteurs ne déclarent aucun conflit d'intérêt.
Les références
1. Kligman, AM Quelle est la « vraie » fonction de la peau ? Exp. Dermatol. 2002, 11, 159.
2. Zhang, S. ; Duan, E. Lutte contre le vieillissement cutané : Le chemin du banc au chevet. Transplantation cellulaire. 2018, 27, 729–738. [Référence croisée] [PubMed]
3. Farage, Massachusetts ; Miller, KW; Elsner, P.; Maibach, HI Caractéristiques de la peau vieillissante. Adv. Soins des plaies 2013, 2, 5–10. [Référence croisée] [PubMed]
4. Farage, Massachusetts ; Miller, KW; Maibach, HI (Eds.) Changements dégénératifs dans le vieillissement cutané. Dans Textbook of Aging Skin; Springer : Berlin/Heidelberg, Allemagne, 2017 ; p. 15–30.
5. Vierkötter, A.; Krutmann, J. Influences environnementales sur le vieillissement cutané et les manifestations ethniques spécifiques. Dermatoendocrinologie 2012, 4, 227–231. [Référence croisée] [PubMed]
6. Shin, J.-W. ; Kwon, S.-H.; Choi, J.-Y. ; Na, J.-I. ; Hein, C.-H. ; Choi, H.-R.; Park, K.-C. Mécanismes moléculaires du vieillissement dermique et approches anti-âge. Int. J. Mol. Sci. 2019, 20, 2126. [Référence croisée]
7. Rinnerhaler, M. ; Bischof, J.; Streubel, M.; Trost, A.; Richter, K. Stress oxydatif dans le vieillissement de la peau humaine. Biomolécules 2015, 5, 545–589. [Référence croisée]
8. Chatatikun, M. ; Chiabchalard, A. Plantes thaïlandaises avec des niveaux élevés d'antioxydants, une activité de piégeage des radicaux libres, une activité anti-tyrosinase et anti-collagénase. Complément BMC. Alterner. Méd. 2017, 17, 487. [Référence croisée]
9. Lephart, ED Vieillissement cutané et stress oxydatif : les effets anti-âge d'Equol via des mécanismes biochimiques et moléculaires. Vieillissement Rés. Rév. 2016, 31, 36–54. [Référence croisée]
10. Peng, H.-Y. ; Lin, C.-C.; Wang, H.-Y.; Shih, Y.; Chou, S.-T. Les effets d'altération de la mélanogenèse de l'huile essentielle d'Achillea millefolium L. et de l'acétate de linalyle : Implication du stress oxydatif et des voies de signalisation JNK et ERK dans les cellules de mélanome. PLoS ONE 2014, 9, e95186. [Référence croisée]
11. Parc, JH ; Ku, HJ; Lee, JH; Park, J.-W. Le déficit en IDH2 accélère la pigmentation de la peau chez la souris en améliorant la mélanogénèse. Rédox Biol. 2018, 17, 16–24. [Référence croisée]
12. Jiratchayamaethasakul, C. ; Ding, Y.; Hwang, O.; Im, S.-T.; Jang, Y.; Myung, S.-W.; Lee, JM; Kim, H.-S. ; Ko, S.-C.; Lee, S.-H. Criblage in vitro des activités inhibitrices et antioxydantes de l'élastase, de la collagénase, de la hyaluronidase et de la tyrosinase de 22 extraits de plantes halophytes pour de nouveaux cosméceutiques. Poisson. Aquat. Sci. 2020, 23, 6. [Renvoi]
13. Thing, TS ; Hili, P.; Naughton, DP Activités anti-collagénase, anti-élastase et anti-oxydante des extraits de 21 plantes. Complément BMC. Alterner. Méd. 2009, 9, 27. [Référence croisée] [PubMed]
14. Bravo, K. ; Alzate, F.; Osorio, E. Fruits de plantes andines sauvages et cultivées sélectionnées comme sources de composés potentiels à activité antioxydante et anti-âge. Ind. Cultures Prod. 2016, 85, 341–352. [Référence croisée]
15. Kunwar, RM ; Shrestha, CP ; Bussmann, RW Phytothérapie traditionnelle dans l'extrême ouest du Népal : Une évaluation pharmacologique. J. Ethnobiol. Ethnomédecine 2010, 6, 35. [CrossRef] [PubMed]
16. Singh, G.; Passsari, AK ; Léon, VV; Mishra, VK ; Subbarayan, S.; Singh, BP; Kumar, B.; Kumar, S.; Gupta, VK ; Lalhlenmawia, H. Évaluation de la variabilité du contenu phénolique ainsi que du potentiel antioxydant, antimicrobien et cytotoxique de certaines plantes médicinales traditionnelles de l'Inde. Devant. Usine Sci. 2016, 7, 407. [Référence croisée]
17. Byun, N.-y. ; Heo, M.-R. ; Yim, S.-H. Corrélation des activités anti-rides et anti-radicaux libres de la noix d'arec avec les teneurs en phénols et en flavonoïdes. Sci alimentaire. Technol. 2021, 41, 1041-1049. [Référence croisée]
18. Sellar, T. ; Arulrajah, AA; Lanka, V. Le rôle du soutien social sur l'épuisement professionnel dans l'entreprise de confection. Int. Bus. Rés. 2019, 12, 110–118. [Référence croisée]
19. Vierkötter, A.; Schikowski, T.; Ranft, U. ; Sugiri, D.; Matsui, M.; Kramer, U.; Krutmann, J. Exposition aux particules en suspension dans l'air et vieillissement cutané extrinsèque. J. Investig. Dermatol. 2010, 130, 2719-2726. [Référence croisée]
20. Lee, A.-Y. Anomalies de la pigmentation cutanée et leur relation possible avec le vieillissement cutané. Int. J. Mol. Sci. 2021, 22, 3727. [Référence croisée]
21. Popoola, OK ; Marnewick, JL; Rautenbach, F.; Ameer, F.; Iwuoha, EI ; Hussein, AA Inhibition du stress oxydatif et des enzymes liées au vieillissement cutané par les chalcones prénylées et d'autres flavonoïdes d'Helichrysum teretifolium. Molécules 2015, 20, 7143–7155. [Référence croisée]
22. Tu, Y. ; Quan, T. Stress oxydatif et vieillissement du tissu conjonctif de la peau humaine. Cosmétique 2016, 3, 28. [CrossRef]
23. Azmi, N. ; Hashim, P.; Hashim, sous-ministre ; Halimoon, N.; Majid, NMN Activité inhibitrice anti-élastase, anti-tyrosinase et métalloprotéinase matricielle-1 des extraits de vers de terre en tant que nouvel agent anti-vieillissement potentiel. Pac asiatique. J. Trop. Biomédical. 2014, 4, S348–S352. [Référence croisée] [PubMed]
24. Rangsinth, P. ; Sillapachaiyaporn, C.; Nilkhet, S.; Tencomnao, T.; Ung, AT ; Chuchawankul, S. Les composés bioactifs dérivés de champignons servent potentiellement d'inhibiteurs de la protéase principale du SRAS-CoV -2 : une approche in silico. J. Tradition. Complément. Méd. 2021, 11, 158–172. [Référence croisée] [PubMed]
25. Konan, NA ; Bacchi, EM Effet antiulcérogène et toxicité aiguë d'un extrait hydroéthanolique de feuilles de noix de cajou (Anacardium occidentale L.). J. Ethnopharmacol. 2007, 112, 237–242. [Référence croisée] [PubMed]
26. Ajileye, O. ; Obuotor, E.; Akinkunmi, E.; Aderogba, M. Isolement et caractérisation des composés antioxydants et antimicrobiens de l'extrait de feuille d'Anacardium occidentale L. (Anacardiaceae). Université J. King Saud. Sci. 2015, 27, 244-252. [Référence croisée]
27. Chotphruethipong, L. ; Benjakul, S.; Kijroongrojana, K. Optimisation de l'extraction de composés phénoliques antioxydants à partir de feuilles de cajou (Anacardium occidentale L.) en utilisant la méthodologie de surface de réponse. J. Food Biochem. 2017, 41, e12379. [Référence croisée]
28. Moriyama, H. ; Iizuka, T.; Nagai, M.; Miyazaki, H.; Satoh, T. Activité anti-inflammatoire de l'extrait de feuille de Cassia alata traité thermiquement et de son glycoside flavonoïde. Yakugaku Zasshi 2003, 123, 607–611. [Référence croisée]
29. Chatatikun, M. ; Yamauchi, T.; Yamasaki, K.; Aiba, S.; Chiabchalard, A. Effet anti-mélanogénique des feuilles de substrats Croton roxburghii et Croton dans les cellules B16F10 stimulées par MSH. J. Tradition. Complément. Méd. 2019, 9, 66–72. [Référence croisée]
30. Wang, R. ; Pan, F.; Son.; Kuang, F.; Wang, L.; Lin, X. Extraits de graines de noix d'arec (Areca catechu L.) extraits par des solvants conventionnels et respectueux de l'environnement : Relation entre compositions phytochimiques et activités biologiques par analyse multivariée. J. Appl. Rés. Méd. Arôme. Plantes 2021, 25, 100336. [CrossRef]
31. Nonaka, G.-i. ; Hsu, F.-L.; Nishioka, I. Structures des procyanidines dimères, trimères et tétramères d'Areca catechu LJ Chem. Soc. Chim. Commun. 1981, 15, 781–783. [Référence croisée]
32. Duangjan, C. ; Rangsinth, P.; Zhang, S.; Wink, M.; Tencomnao, T. Anacardium Occidentale, L. Les extraits de feuilles protègent contre la toxicité oxydative induite par le glutamate/H2O2- et induisent l'excroissance des neurites : l'implication de la voie de signalisation SIRT1/Nrf2 et de la protéine transmembranaire Teneurin 4. Devant. Pharmacol. 2021, 12, 627738. [Référence croisée] [PubMed]
33. Duangjan, C. ; Rangsinth, P.; Gu, X.; Zhang, S.; Wink, M.; Tencomnao, les extraits de feuilles de T. Glochidion zeylanicum présentent des propriétés de prolongation de la durée de vie et de résistance au stress oxydatif chez Caenorhabditis elegans via les voies de signalisation DAF-16/FoxO et SKN-1/Nrf-2. Phytomédecine 2019, 64, 153061. [CrossRef] [PubMed]
34. Oladeji, OS ; Adelowo, FE; Oluyori, AP ; Bankole, DT Description ethnobotanique et activités biologiques de Senna alata. Evid. Complément à base. Alternat. Méd. 2020, 2020, 2580259. [Référence croisée] [PubMed]
35. Peng, W. ; Liu, Y.-J.; Wu, N.; Soleil, T. ; Lui, X.-Y. ; Gao, Y.-X. ; Wu, C.-J. Areca catechu L. (Arecaceae) : Un examen de ses utilisations traditionnelles, botanique, phytochimie, pharmacologie et toxicologie. J. Ethnopharmacol. 2015, 164, 340–356. [Référence croisée]
36. Salehi, B. ; Konovalov, DA; Fru, P.; Kapewangolo, P.; Péron, G.; Ksenija, MS ; Cardoso, SM; Pereira, OU; Nigam, M.; Nicola, S. Areca catechu—De la ferme aux applications alimentaires et biomédicales. Phytother. Rés. 2020, 34, 2140–2158. [Référence croisée]
37. Verma, DK ; Bharat, M.; Nayak, D.; Shanbhag, T.; Shanbhag, V.; Rajput, RS Areca catechu : effet de l'extrait éthanolique topique sur la cicatrisation des brûlures chez les rats albinos. Int. J. Pharmacol. Clin. Sci. 2012, 1, 74–78.
38. Pithayanukul, P. ; Nithitanakool, S.; Bavovada, R. Potentiel hépatoprotecteur d'extraits de graines d'Areca catechu et de noix de galle de Quercus infectoria. Molécules 2009, 14, 4987–5000. [Référence croisée]
39. Salehi, B. ; Gültekin-Özgüven, M.; Kirkin, C.; Özçelik, B.; Morais-Braga, MFB; Carneiro, JNP; Bezerra, CF; Silva, TGd ; Coutinho, HDM ; Amina, B. Effets antioxydants, antimicrobiens et anticancéreux des plantes Anacardium : Une perspective ethnopharmacologique. Devant. Endocrinol. 2020, 11, 295. [Référence croisée]
40. Duangjan, C. ; Rangsinth, P.; Zhang, S.; Gu, X.; Wink, M.; Tencomnao, T. Effets neuroprotecteurs de l'extrait de feuille de Glochidion zeylanicum contre la toxicité induite par le H2O2/glutamate dans les cellules neuronales en culture et la toxicité induite par A chez Caenorhabditis elegans. Biologie 2021, 10, 800. [CrossRef]
41. Duangjan, C. ; Rangsinth, P.; Gu, X.; Wink, M.; Tencomnao, T. Prolongation de la durée de vie et propriétés de résistance au stress oxydatif des extraits de feuilles d'Anacardium occidentale L. chez Caenorhabditis elegans. Oxyde. Méd. Cellule. Longev. 2019, 2019, 9012396. [Référence croisée]
42. Duangjan, C. ; Rangsinth, P.; Gu, X.; Zhang, S.; Wink, M.; Tencomnao, T. Données sur les effets des extraits de feuilles de Glochidion zeylanicum chez Caenorhabditis elegans. Fiche de données 2019, 26, 104461. [CrossRef] [PubMed]
43. Sugumar, M. ; Doss, DVA ; Maddisetty, PP Effets protecteurs hépato-rénaux de l'extrait hydroéthanolique de Senna alata sur les systèmes antioxydants enzymatiques et non enzymatiques chez les rats diabétiques induits par la streptozotocine. Intégr. Méd. Rés. 2016, 5, 276–283. [Référence croisée] [PubMed]
44. Aryal, S.; Baniya, MK; Danekhu, K.; Kunwar, P.; Gurung, R.; Koirala, N. Teneur phénolique totale, teneur en flavonoïdes et potentiel antioxydant des légumes sauvages de l'ouest du Népal. Plantes 2019, 8, 96. [CrossRef] [PubMed]
45. Panche, A. ; Diwan, A.; Chandra, S. Flavonoïdes : Un aperçu. J. Nutr. Sci. 2016, 5, e47. [Référence croisée] [PubMed]
46. Tazeddinova, D. ; Rahman, M.; Hamdan, SB ; Matin, MM; Bin Bakri, député ; Rahman, MM Associations de polyphénols à base de plantes avec des protéines : une étude prospective. BioResources 2022, 17, 1–25. [Référence croisée]
47. Prasansuklab, A. ; Tencomnao, T. Acanthus ebracteate extrait de feuille fournit une protection des cellules neuronales contre les lésions de stress oxydatif induites par le glutamate. Complément BMC. Alterner. Méd. 2018, 18, 278. [Référence croisée]
48. Abhijit, S. ; Manjushree, D. Anti-hyaluronidase, l'activité anti-élastase de Garcinia indica. Int. J.Bot. 2010, 6, 299-303.
49. Widowati, W. ; Rani, AP ; Hamzah, RA ; Arumwardana, S.; Afifah, E.; Kusuma, HSW ; Rihibiha, DD ; Nufus, H.; Amalia, A. Dosages antioxydants et anti-âge de l'extrait d'Hibiscus sabdariffa et de ses composés. Nat. Prod. Sci. 2017, 23, 192–200. [Référence croisée]
50. Fernand, VE ; Dinh, DT ; Washington, SJ; Fakayode, SO ; Losso, JN; van Ravenswaay, RO ; Warner, IM Détermination de composés pharmacologiquement actifs dans des extraits de racine de Cassia alata L. par l'utilisation de la chromatographie liquide à haute performance. Talante 2008, 74, 896–902. [Référence croisée]
51. Jain, V. ; Garg, A.; Parascandola, M.; Chaturvedi, P.; Khariwala, SS ; Stepanov, I. Analyse des alcaloïdes dans les produits contenant des noix d'arec par chromatographie liquide-spectrométrie de masse en tandem. J. Agric. Chimie alimentaire. 2017, 65, 1977-1983. [Référence croisée]
52. Liu, A. ; Xu, L.; Zou, Z.; Yang, S. Études sur les constituants chimiques des feuilles de Cassia alata. Zhongguo Zhong Yao Za Zhi 2009, 34, 861–863. [Pub Med]
53. Ming-Yue, W. ; Jin-Hui, L.; Jian-Guo, L. Détermination des polyphénols dans Areca catechu par HPLC. Nat. Prod. Rés. Dév. 2011, 23, 101.
54. Mohamed, AR ; Ali, A.; Aboul-Enein, S.; Mohamed, F.; Abou, E.; Magdy, M.; Mohammed, A. Enquête phytochimique, cytotoxique et antioxydante sur les feuilles de Cassia alata poussant en Égypte. J.Innov. Pharm. Biol. Sci 2017, 4, 97–105.
55. Okpuzor, J. ; Ogbunugafor, H.; Kareem, G.; Igwo-Ezikpe, M. Enquête in vitro sur des composés phénoliques antioxydants dans des extraits de Senna alata. Rés. J. Phytochem. 2009, 3, 68–76. [Référence croisée]
56. Pongnimitprasert, N. ; Wadkhien, K.; Chinpaisal, C.; Satiraphan, M.; Wetwitayaklung, P. Effets anti-inflammatoires de la rhéine et des extraits bruts de Cassia alata L. dans les cellules HaCaT. Sci. Ing. Goujon de santé. 2018, 12, 19–32.
57. Promgool, T. ; Pancharoen, O.; Deachathai, S. Composés antibactériens et antioxydants de Cassia alata Linn. Songklanakarin J. Sci. Technol. 2014, 36, 459–463.
58. Singh, B.; Nadkarni, JR ; Vishwakarma, RA; Bharate, SB ; Nivsarkar, M.; Anandjiwala, S. L'extrait hydroalcoolique de feuilles de Cassia alata (Linn.) et son principal composé, la rhéine, présentent une activité antiallergique via la stabilisation des mastocytes et l'inhibition de la lipoxygénase. J. Ethnopharmacol. 2012, 141, 469–473. [Référence croisée]
59. Wu, Q. ; Yang, Y.; Simon, JE Détermination qualitative et quantitative HPLC/MS des proanthocyanidines dans la noix d'arec (Areca catechu). Chim. Biodivers. 2007, 4, 2817–2826. [Référence croisée]
60. Zhang, W.-M. ; Huang, W.-Y.; Chen, W.-X.; Han, L.; Zhang, H.-D. Optimisation des conditions d'extraction des polyphénols des graines d'arec et évaluation de leurs activités antioxydantes. Molécules 2014, 19, 16416–16427. [Référence croisée]
61. Zhang, X.; Mei, W.; Zeng, Y.; Liu, J. Constituants phénoliques des fruits d'Areca catechu et leurs activités antibactériennes. J. Trop. Subtrop. Bot. 2009, 17, 74–76.
62. Tamada, T. ; Kinoshita, T.; Kurihara, K.; Adachi, M.; Ohhara, T.; Imai, K.; Kuroki, R.; Tada, T. L'analyse combinée des neutrons et des rayons X à haute résolution de l'élastase inhibée confirme le trou d'oxyanion du site actif, mais s'oppose à une liaison hydrogène à faible barrière. Confiture. Chim. Soc. 2009, 131, 11033-11040. [Référence croisée] [PubMed]
63. Ismaya, WT ; Rozeboom, HJ; Weijn, A.; Mes, JJ; Fusetti, F.; Wichers, HJ; Dijkstra, BW Structure cristalline de la tyrosinase du champignon Agaricus bisporus : Identité des sous-unités tétramères et interaction avec la tropolone. Biochimie 2011, 50, 5477–5486. [Référence croisée] [PubMed]
Clause de non-responsabilité/note de l'éditeur :Les déclarations, opinions et données contenues dans toutes les publications sont uniquement celles des auteurs et contributeurs individuels et non de MDPI et/ou des éditeurs. MDPI et/ou le(s) éditeur(s) déclinent toute responsabilité pour tout dommage aux personnes ou aux biens résultant de toute idée, méthode, instruction ou produit mentionné dans le contenu.
【Pour plus d'informations :george.deng@wecistanche.com / WhatApp :86 13632399501】


