

Expression génétique des récepteurs Toll-like distinctifs et réponse gliale dans différentes régions cérébrales de la tremblante naturelle, partie 1
Jun 13, 2024
Abstrait:
Les maladies à prions sont des maladies neurodégénératives chroniques et mortelles caractérisées par l'accumulation de protéine prion spécifique à la maladie (PrPSc), des modifications spongiformes, une perte neuronale et une gliose.
La maladie à prions, également connue sous le nom de maladie de la foire du temple, maladie mangeuse de cire, etc., est une infection virale aiguë causée par des prions. La maladie se transmet principalement par la consommation d'aliments crus contenant des prions. Une fois infecté par des prions, il peut provoquer une inflammation du cerveau et des lésions du système nerveux, ainsi que des symptômes tels que des maux de tête, des vomissements et de la fièvre.
Cependant, face à une telle situation, nous ne pouvons pas perdre confiance en notre mémoire en raison de l’existence d’une maladie à prions. La plupart des personnes infectées peuvent récupérer et restaurer leur mémoire après le traitement.
Bien entendu, dans une perspective préventive, nous pouvons essayer de manger davantage d’aliments cuits pour éviter l’infection à prion. Dans le même temps, si vous ressentez des symptômes, vous devez également consulter un médecin dès que possible pour éviter une aggravation de la maladie.
Dans la vie quotidienne, nous pouvons essayer quelques exercices simples de mémoire, comme lire, dresser des listes, organiser des événements et des informations, etc. pour améliorer notre mémoire. Ces entraînements ne nécessitent pas beaucoup de temps et d’énergie, mais ils sont très importants pour maintenir un cerveau sain et une fonction de mémoire efficace.
En bref, lorsque nous sommes confrontés à des maladies telles que la maladie à prions, nous devons y faire face de manière positive, rechercher un traitement médical professionnel et des mesures préventives, et prêter attention aux exercices de mémoire quotidiens pour garantir notre santé physique et un travail efficace. On peut voir que nous devons améliorer la mémoire, et le Cistanche peut améliorer considérablement la mémoire car le Cistanche est une matière médicinale traditionnelle chinoise avec de nombreux effets uniques, dont l'un est d'améliorer la mémoire. L'effet du Cistanche provient des différents ingrédients actifs qu'il contient, notamment l'acide tannique, les polysaccharides, les glycosides flavonoïdes, etc. Ces ingrédients peuvent favoriser la santé cérébrale de diverses manières.

Cliquez sur connaître les moyens d'améliorer la fonction cérébrale
De plus en plus de preuves montrent que la réponse neuroinflammatoire est un élément clé des maladies à prion et contribue à la neurodégénérescence.
Les récepteurs Toll-like (TLR) ont été proposés comme médiateurs importants des réponses immunitaires innées déclenchées dans le système nerveux central dans d'autres maladies neurodégénératives humaines, notamment la maladie d'Alzheimer, la maladie de Parkinson et la sclérose latérale amyotrophique.
Cependant, le rôle des TLR dans les maladies à prions est mal connu et leur implication dans la neuropathologie de la tremblante naturelle n'a pas été étudiée. Nous avons évalué l'expression génique des TLR ovins dans quatre régions anatomiquement distinctes du cerveau chez des moutons naturels infectés par la tremblante et évalué les corrélations possibles entre l'expression génique et les caractéristiques pathologiques de la maladie à prions.
Nous avons observé des changements significatifs dans l'expression du TLR chez les moutons infectés par la tremblante, en corrélation avec le degré de spongiose, de dépôt de PrPSc et de gliose dans chacune des régions étudiées.
Remarquablement, TLR4 était le seul gène régulé positivement dans toutes les régions, quelle que soit la gravité de la neuropathologie. Dans l'hippocampe, nous avons observé une neuropathologie plus légère associée à un profil d'expression du gène TLR distinct et à la présence d'une morphologie microgliale particulière, appelée rodmicroglie, décrite ici pour la première fois dans le cerveau d'un mouton infecté par la tremblante.
La coïncidence de ces caractéristiques suggère une neuroprotection partielle de l'hippocampe. Enfin, une comparaison des résultats obtenus chez des moutons naturellement infectés par rapport à un modèle de souris surdimensionné (souris tg338) a révélé des modèles distincts d'expression du gène TLR.
Mots-clés : prion; tremblante; récepteurs de type péage ; neuroinflammation; microglie; astrocytes.
1. Présentation
Les encéphalopathies spongiformes transmissibles (EST), ou maladies à prions, sont un groupe de maladies neurodégénératives mortelles qui comprennent la maladie de Creutzfeldt-Jakob (MCJ) chez l'homme, la tremblante du mouton et de la chèvre, l'encéphalopathie spongiforme bovine (ESB) chez les bovins et la maladie débilitante chronique chez les cervidés ( MDC).
Ces EST se caractérisent par la transformation de la protéine prion codée par l'hôte (PrPC) en une isoforme infectieuse, la PrPSc, qui s'accumule préférentiellement dans le système nerveux et le système lymphoréticulaire (LRS), et par une réaction immunitaire inflammatoire dans le système nerveux central (SNC) [1 ,2].Les maladies à prions, comme la tremblante, peuvent être naturellement contractées par exposition orale à la PrPSc.
Après avoir traversé la barrière intestinale et subi une réplication primaire dans les tissus lymphoïdes, la PrPSc atteint le SNC via un processus appelé neuroinvasion. L'infection se propage à partir de sites du tractus gastro-intestinal via les nerfs vagues et splanchniques jusqu'au tronc cérébral et à la moelle épinière, respectivement [3,4].
En atteignant le SNC, la PrPSc se propage depuis les régions torostrales caudales, c'est-à-dire via le tronc cérébral rostral jusqu'au cervelet, au diencéphale et au cortex frontal [5]. L'accumulation anatomiquement stéréotypée de PrPSc suggère que sa propagation est médiée par la connectivité neuronale et/ou la vulnérabilité sélective de différentes régions cérébrales.
Des facteurs de l'hôte tels que le génotype de la PrPSc, la race et l'âge au moment de l'infection contribuent à l'ampleur du dépôt de la PrPSc et à la distribution des lésions spongiformes.
Cependant, la base moléculaire des interactions hôte-prion qui déterminent le ciblage sélectif de la PrPSc vers des régions spécifiques du cerveau reste inconnue et constitue l'un des aspects les plus intrigants du phénomène des souches à prions.
À l'origine, on supposait que le système immunitaire ne répondait pas à la PrPSc en raison d'une tolérance naturelle, mais des études au fil du temps ont révélé une activation et une prolifération rapides des microglies et des astrocytes avant même l'apparition des signes cliniques et de la dégénérescence neuronale [6-8].

Cette activation précoce et cette prolifération des microglies et des astrocytes semblent jouer un rôle central dans la pathogenèse des troubles à prions, bien que les mécanismes moléculaires impliqués dans leur activation et le rôle précis des astrocytes réactifs et des microglies dans la pathogenèse de la maladie restent flous [9,10].
De plus, il est largement admis que la distribution et le phénotype des microglies et des astroglies varient selon les régions et les espèces du cerveau [11-14], attribuant à chaque région des caractéristiques intrinsèques qui influencent la vulnérabilité à la neurodégénérescence [10,15,16].
Ce phénomène est particulièrement évident au stade préclinique, au cours duquel les microglies et les astroglies répondent à l'infection à prion d'une manière spécifique à une région.
Cependant, à mesure que la maladie progresse, une réponse neuroinflammatoire plus courante commence à prédominer, diluant la plupart des caractéristiques régionales [17,18]. Au cours des dernières années, le rôle des récepteurs de type Toll (TLR) dans la réactivité microgliale et astrogliale a été rapporté. dans plusieurs troubles neurodégénératifs, soulignant leur influence sur la progression de ces maladies [19-21].
Cependant, les données sur le rôle des TLRs dans les maladies à prions sont rares. Un rôle partiellement protecteur des TLR a été décrit dans la pathologie du prion. Plus précisément, il a été rapporté que la perte de TLR2 [22] et de TLR4 [23] accélère la pathogenèse des prions, tandis que la stimulation de TLR9 ralentit la progression de la maladie chez les modèles murins [24,25].
À ce jour, la plupart des études sur les TLR dans les maladies à prions ont été réalisées in vitro ou sur des modèles murins [8, 22, 26-29], et leur rôle chez les animaux et les humains naturellement infectés reste incertain. À notre connaissance, une étude a été réalisée chez des agneaux nouveau-nés inoculés par voie orale avec la tremblante (c'est-à-dire en utilisant un hôte naturel, mais non naturellement infecté) et a rapporté une surexpression de TLR2 et TLR4 dans le sang aux stades cliniques de la maladie (30).
Deux études ont rapporté une altération de l'expression du gène TLR chez les humains atteints de MCJ sporadique (sCJD) [31,32]. La dérégulation des gènes impliqués dans la réponse immunitaire comprenait la surexpression des ARNm de TLR4 et TLR7 dans le cervelet et du cortex frontal des patients atteints de MCJ sc MM1 et de TLR7 dans le cervelet des patients atteints de MCJ sc VV2.
De plus, Areskeviciute et al. [32] ont inclus le TLR4 dans les 40 principaux régulateurs en amont susceptibles de montrer une expression différentielle dans la MCJs par rapport aux échantillons de cerveau témoins. Nous avons examiné comment l'infection naturelle par la tremblante influence les niveaux de transcription des TLR ovins et de certaines cytokines dans quatre régions du cerveau avec différents degrés de susceptibilité aux prions, sur la base de résultats précédents [18].
L'analyse PCR quantitative (qPCR) a révélé des changements dans l'expression des gènes dans le groupe infecté par la tremblante par rapport au groupe témoin et une réponse dépendante de la région cérébrale.
Fait intéressant, l'hippocampe présentait le profil de lésion le plus distinctif, avec une morphologie microgliale réactive spécifique et un modèle de transcription du TLR. Compte tenu du manque de données expérimentales sur l'expression du gène TLR chez des souris surexprimant la PrP de mouton, nous avons également réalisé des expériences en utilisant des souris tg338 inoculées par voie intracérébrale avec la tremblante.
Nos résultats révèlent certaines similitudes avec des études antérieures utilisant des souris sauvages, mais des différences significatives concernant les résultats concernant la tremblante naturelle.
2. Résultats
2.1. Neuropathologie de la tremblante du mouton naturellement infecté
Nous avons d'abord confirmé la neuropathologie de la tremblante chez les moutons naturellement infectés inclus dans cette étude, comme décrit précédemment (33-36). La spongiose, les dépôts de PrPSc et les cellules gliales réactives ont été examinés dans quatre régions du cerveau des moutons infectés et témoins : le bulbe rachidien (Mo), le thalamus (Th), l'hippocampe (Hc) et le cortex frontal (Fc).
Tous les animaux naturellement infectés étaient au stade clinique de la maladie. Cependant, l'état clinique, basé sur la fréquence et la gravité des signes cliniques, variait chez les moutons, allant de stades cliniques naissants à avancés (Tableau 1).

La figure 1 montre des microphotographies représentatives pour l'évaluation de la vacuolisation et de l'immunocoloration pour PrPSc, GFAP et Iba1, prises dans chacune des régions sélectionnées chez des animaux infectés et témoins.
Comme prévu, aucun signe de vacuolisation ou de dépôt de PrPSc n’a été détecté dans les coupes de tissus du mouton témoin. À l'inverse, chez les moutons infectés par la tremblante, toutes les zones neuroanatomiques présentaient une spongiose, un dépôt de PrPSc et des cellules gliales réactives (p < 0,05).
L'intensité de la vacuolisation, du dépôt de PrPSc et de la gliose a diminué de la moelle oblongate au cortex frontal. Il est intéressant de noter que malgré la proximité du thalamus et de l’hippocampe, des différences significatives dans les scores pour tous les marqueurs pathologiques ont été observées.
Le plus grand degré de spongiose a été observé dans la moelle allongée et le théthalamus, contrairement à la vacuolisation très dispersée trouvée dans l'hippocampe et le cortex frontal.

La vacuolisation intraneuronale était abondante dans les noyaux du bulbe rachidien, comme le montre le noyau moteur dorsal du nerf vague, tandis que la spongiose des neuropilles prédominait dans le thalamus et le cortex frontal (Figure 1A). Très peu de vacuoles ont été trouvées dans le neuropile de l'hippocampe.
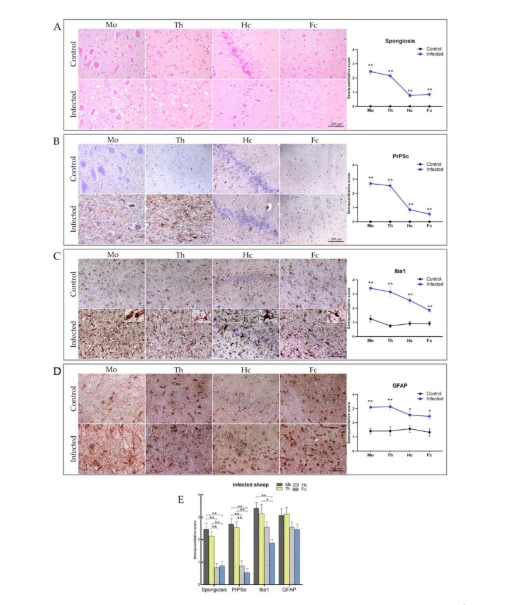
Figure 1. Neuropathologie représentative et évaluation immunohistochimique de la spongiose, du dépôt de PrPSc, de la microgliose et de l'astrogliose dans le SNC des moutons témoins et infectés par la tremblante dans la moelle allongée (Mo), le thalamus (Th), l'hippocampe (Hc) et le cortex frontal (Fc) .
Les graphiques représentent les valeurs d'évaluation semi-quantitatives pour chaque paramètre analysé. (A) La coloration à l'hématoxyline-éosine a montré des modifications de la spongiose dans le SNC chez les moutons infectés par la tremblante et une absence de spongiose chez les moutons témoins. (B) Détection de PrPSc avec l’anticorps L42 dans les régions cérébrales de mouton infectées par la tremblante.
Aucun marquage immunologique n'a été détecté dans le groupe témoin. (C) L'immunocoloration de la molécule adaptatrice ionisée de liaison au calcium -1 (Iba1) a montré une réactivité microgliale accrue chez les moutons infectés par la tremblante par rapport aux moutons témoins.
(D) Immunocoloration de la protéine acide fibrillaire gliale (GFAP) affichant une augmentation de la réaction réactive à l'astrogliose chez les moutons infectés par la tremblante par rapport aux moutons témoins. (E) Comparaisons statistiques de la spongiose, du dépôt de PrPSc, de l’Iba1 et de l’intensité GFAP entre les régions du cerveau.
Les scores vont de 0 (négatif) à 5 (intensité maximale). Des différences significatives dans la spongiose, la PrPSc, l'Iba1 et la GFAP ont été déterminées à l'aide du test t de Student ou du test U de Mann – Whitney pour les données distribuées normalement et non normalement.
Les différences statistiques entre les zones cérébrales ont été déterminées à l'aide d'une analyse de variance unidirectionnelle (ANOVA) ou du test de Kruskal – Wallis pour les données distribuées normalement et non normalement, respectivement. * p < 0.05, ** p < 0,01. Barre d'échelle=200 µm.
Tous les moutons infectés par la tremblante présentaient une accumulation généralisée de PrPSc dans les quatre régions du SNC analysées, à l'exception de trois moutons qui présentaient des signes cliniques naissants et étaient négatifs pour la PrPSc par les résultats de l'immunohistochimie (IHC) et du Western blot (WB) dans le cortex frontal (Tableau 1).
L'intensité de l'immunomarquage PrPSc a révélé une diminution caudale à rostrale, similaire à celle observée pour la spongiose, avec une intensité maximale dans le bulbe rachidien et le thalamus, les deux régions présentant le plus grand degré de vacuolation, et une intensité plus faible dans l'hippocampe et le cortex frontal (Figure 1B).
Dans l'hippocampe, la coloration PrPScimmunocoloration a montré une distribution focale et inégale, contrairement au motif ponctué homogène et dispersé observé dans les sections du cortex frontal.
Nous avons observé quatre modèles morphologiques majeurs de dépôt de PrPSc, comme décrit précédemment [36] : deux modèles intracellulaires, qui comprenaient des dépôts intraneuronaux et intragliaux (y compris intra-astrocytaires et intramicrogliaux), et deux modèles de membrane cellulaire/extracellulaire, qui comprenaient des dépôts de cellules gliales et associés aux neuropiles. dépôt associé (Figure S1).
Les schémas intraneuronaux et associés aux neuropils prédominaient dans toutes les zones du cerveau. Remarquablement, les motifs intaglio et glial étaient considérablement réduits, voire absents, dans le cortex frontal et l'hippocampe, par rapport au bulbe rachidien et au thalamus. Parallèlement à l'IHC, nous avons analysé la présence de prions résistants à la protéase (PrPres) par WB.
Les échantillons de cerveau de moutons infectés par la tremblante présentaient le motif PrPres classique à trois bandes associé à la tremblante classique, avec une masse moléculaire du fragment non glycosylé d'environ 19 kDa (Figure 2).
Malgré un certain degré de variabilité, le signal PrPres augmentait avec la sévérité des signes cliniques dans toutes les régions cérébrales et était plus abondant dans les zones cérébrales caudales.
Le WB pour PrPres était positif dans le bulbe rachidien et le thalamus chez tous les moutons infectés par la tremblante. En revanche, les échantillons d’hippocampe et de cortex frontal n’étaient pas positifs pour PrPres chez tous les animaux infectés.
Bien que l'IHC ait été positif pour PrPres dans l'hippocampe de tous les moutons infectés, 4/13 étaient négatifs par WB. Dans le cortex frontal, 3/13 des moutons étaient PrPres-négatifs par IHC, et 4/13 étaient PrPres-négatifs par WB.
En plus de la vacuolisation et du dépôt de PrPSc, l'activation des cellules gliales a été largement documentée comme un événement précoce dans la pathogenèse des maladies liées à un mauvais repliement des protéines.
Pour caractériser la glie réactive, toutes les zones du cerveau ont été soumises à un IHC en utilisant des anticorps anti-GFAP pour détecter les astrocytes et des anticorps anti-Iba1 pour détecter les microglies.
L'immunocoloration Iba1, qui détecte à la fois les microglies au repos et activées (37), était significativement augmentée dans toutes les régions du cerveau chez les moutons infectés par la tremblante par rapport aux moutons témoins et a révélé des différences marquées dans la morphologie microgliale entre les régions du cerveau chez les animaux infectés (Figure 1C).
L'état d'activation des cellules microgliales est défini en fonction de trois morphologies principales : ramifiées, hypertrophiques et amiboïdes [38,39]. Les cellules microgliales à l'état « de surveillance » ou relativement inactif ont une morphologie ramifiée, caractérisée par un petit corps cellulaire avec de nombreux processus fins, comme observé chez nos animaux témoins.
L'état actif est caractérisé par une morphologie amiboïde, communément associée à l'état phagocytaire [38] et constituée de corps cellulaires sphériques et non ramifiés. La morphologie hypertrophique est caractérisée par des microglies avec un corps cellulaire plus grand et des processus plus courts et plus épais, et est associée à la production et à la libération de médiateurs inflammatoires [40,41].
La morphologie amiboïde était la plus abondante dans la moelle oblongée des moutons infectés par la tremblante. Dans le thalamus, la morphologie amiboïde a été observée mais n'est pas prédominante : une variété de processus larges et minces mêlés à des processus clairsemés et épais issus de corps cellulaires allongés, correspondant à des microglies hypertrophiques.
La morphologie des microglies prolifératives du cortex frontal et de l'hippocampe différait nettement de celle de la moelle allongée et du thalamus. Dans les deux régions, les microglies hypertrophiées prédominaient et les microglies amiboïdes étaient pratiquement absentes.
Remarquablement, la région Cornu Ammonis 3 (CA3) de l'hippocampe a montré les plus grandes différences en termes de morphologie des microglies, présentant un motif microglial connu sous le nom de microglie en bâtonnet qui n'a été observé dans aucune autre région du cerveau.
Ces différences marquées observées dans l'évaluation de l'hippocampe nous ont incité à procéder à un examen détaillé des sous-champs CA1, 3, 4 et de la strate lacunose-moléculaire (SLM).

Figure 2. Détection par Western blot de PrPres dans le SNC de moutons témoins et naturels infectés par la tremblante. Des quantités égales de protéines ont été chargées pour une comparaison adéquate, et des immunoblots ont été effectués en utilisant l'anticorps monoclonal SHA31 pour l'analyse d'échantillons de (A) moelle oblongate, (B ) le thalamus, (C) l'hippocampe et (D) le cortex frontal de moutons infectés par la tremblante présentant des signes cliniques naissants (échantillons 1 à 5) et des signes cliniques avancés (échantillons 6 à 13). La ligne 14 montre le contrôle négatif et la ligne 15 un échantillon d'homogénat de cerveau de mouton non infecté non soumis à une digestion pK.
L’immunocoloration GFAP a révélé une astrogliose marquée chez les moutons infectés par la tremblante par rapport aux moutons témoins (Figure 1D). Morphologiquement, les astrocytes des moutons infectés présentaient systématiquement des corps et des processus cellulaires hypertrophiques, confirmant la présence d'une astrogliose réactive, tandis que les moutons témoins présentaient la morphologie étoilée typique de l'état non activé.
Dans le bulbe rachidien et le thalamus, l'immunocoloration GFAP était plus intense, avec l'apparition de réseaux d'astrocytes dus à des processus qui se chevauchent. Dans l'hippocampe et le cortex frontal, les astrocytes étaient uniformément répartis, avec la présence de corps étoilés hypertrophiques isolés.
For more information:1950477648nn@gmail.com


