

L'acide punicique et son rôle dans la prévention des troubles neurologiques : une revue, partie 3
Mar 12, 2024
3.2. Effets de l'acide punicique sur les maladies neurodégénératives
L'acide punicique pourrait être lié à la prévention de la neurodégénérescence par plusieurs voies différentes, notamment (1) les mécanismes intracellulaires liés aux dommages oxydatifs via les récepteurs activés par les proliférateurs de peroxysomes (PPAR) et la paraoxonase 1 (PON1) associée aux lipoprotéines de haute densité (HDL) ; (2) l'environnement tissulaire local tel que la fonction synaptique via les calpaïnes, et (3) l'environnement systémique tel que l'inflammation et le métabolisme lipidique via les PPAR et le métabolisme du glucose avec le transporteur de glucose de type 4 (GLUT4) (Tableau 1).
Les exosomes sont des substances présentes dans les cellules qui jouent un rôle important dans le maintien des fonctions physiologiques normales des cellules. Les recherches menées ces dernières années ont montré que les peroxysomes sont étroitement liés à la mémoire humaine et jouent un rôle important dans l'amélioration des capacités cognitives humaines.
Premièrement, les exosomes peuvent favoriser le métabolisme énergétique des cellules et augmenter le niveau d’énergie du corps. Cela est particulièrement évident dans le cerveau humain, car le cerveau est l’un des organes les plus complexes du corps humain et nécessite une grande quantité d’énergie pour soutenir la pensée, la mémoire et d’autres fonctions des personnes. Si le niveau de peroxysomes dans le corps peut être maintenu efficacement, la mémoire des gens sera plus stable et plus durable.
Deuxièmement, les exosomes peuvent favoriser l’élimination des radicaux libres dans le corps et empêcher les cellules d’être endommagées par les attaques des radicaux libres. Les radicaux libres sont des produits du métabolisme cellulaire. Ils existent en quantités énormes dans le corps humain et peuvent endommager la structure et la fonction des molécules présentes dans les cellules. Si les peroxysomes du corps peuvent éliminer efficacement ces radicaux libres, la santé et la stabilité des cellules peuvent être maintenues, améliorant ainsi la mémoire et les capacités cognitives des personnes.
Enfin, les oxysomes peuvent également améliorer la capacité antioxydante des personnes, protégeant ainsi l’organisme des maladies. L'état de santé des gens est étroitement lié à la mémoire. Si le corps est en bonne santé, la mémoire et les capacités cognitives des personnes seront également plus fortes. Les oxyisosomes sont de bons antioxydants qui protègent le corps des radicaux libres et empêchent le corps de s'affaiblir à cause de la maladie.
Bref, les exosomes ont un impact très important sur la mémoire humaine et les capacités cognitives. Ils peuvent maintenir le métabolisme normal des cellules, protéger les cellules des radicaux libres et améliorer la capacité antioxydante humaine. Par conséquent, nous devons activement maintenir les niveaux de peroxysomes dans le corps pour améliorer davantage notre mémoire et nos capacités cognitives. On voit que nous devons améliorer la mémoire, et Cistanche deserticola peut améliorer considérablement la mémoire, car Cistanche deserticola peut également réguler l'équilibre des neurotransmetteurs, comme en augmentant les niveaux d'acétylcholine et de facteurs de croissance. Ces substances sont très importantes pour la mémoire et l’apprentissage. En outre, Cistanche deserticola peut également améliorer la circulation sanguine et favoriser l'apport d'oxygène, ce qui peut garantir que le cerveau reçoive suffisamment de nutriments et d'énergie, améliorant ainsi la vitalité et l'endurance du cerveau.

Cliquez sur connaître 10 façons d'améliorer la mémoire
L'acide punicica peut agir comme un agoniste de PPAR, augmentant l'expression de l'ARNm de PPAR-, PPAR-, PPAR- et PPAR-, et se liant à la fois à PPAR- et PPAR- [83,84]. Il augmente l'expression de la protéine GLUT4 [85] et augmente les propriétés anti-oxydantes de l'activité HDL et PON1 [86,87].
Enfin, l'acide punicique peut agir comme un inhibiteur de la calpaïne, qui joue un rôle clé dans la génération de ROS, et la calpaïne peut jouer un rôle dans la génération de ROS mitochondriales et la dégradation des HDL (88).
3.2.1. L'acide punicique augmente l'expression des récepteurs activés par les proliférateurs de peroxysomes (PPAR)
Il existe une relation entre le rôle des PPAR tels que PPAR-, PPAR- /δ et PPAR- et les maladies neurodégénératives, en particulier la maladie d'Alzheimer. À l'intérieur du cerveau, les activités attribuées au PPAR comprennent la réduction du stress oxydatif, la neuroinflammation, l'hyperphosphorylation de la tau, la formation et l'agrégation de moins d'A, le métabolisme du glucose, l'autophagie, la neurotransmission et des aspects du métabolisme des lipides tels que l'oxydation des acyl-CoA gras et la biosynthèse des AGPI.
De même, PPAR-/δ régule le processus de myélinisation du système nerveux central, tandis que PPAR- est impliqué dans la biogenèse des neurones, la neuroinflammation et la neurodégénérescence (89,90). Chez les patients atteints de maladies neurologiques, les PPAR sont régulés négativement (91).
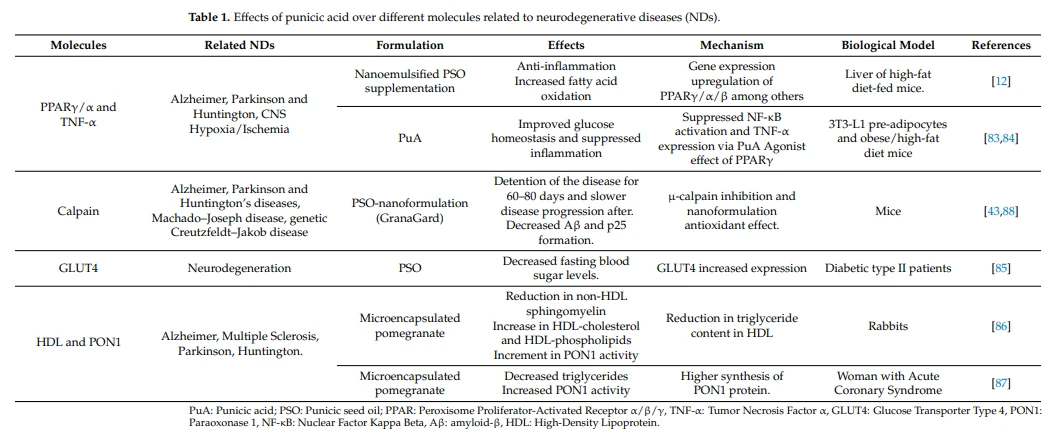
Les effets de l'acide punique sur les PPAR ont été étudiés au fil du temps. Les preuves montrent que l'acide punicique diminue l'inflammation induite par les cytokines pro-inflammatoires Tumor Necrosis Factor Alpha (TNF-) et l'interleukine 6 (IL-6) sur les pré-adipocytes 3T3-L1.
De même, l'expression protéique améliorée par l'acide punicique de PPAR- réduit l'activité transcriptionnelle de la sous-unité p65 du facteur nucléaire Kappa B (NFκB), réduit l'expression de l'ARNm du suppresseur de signalisation des cytokines 3 (SOCS3) et atténue la protéine tyrosine phosphatase 1B (PTP1B) induite par le TNF-. [83,84].
Une étude plus récente menée sur le foie de souris nourries avec un régime riche en graisses complété par des nanoémulsions de PSO a révélé que l'acide punicique augmentait l'expression des gènes liés au métabolisme lipidique PPAR-, PPAR- et PPAR-, de la synthase d'acide gras (Fasn) et de la liaison aux éléments régulateurs des stérols. facteur de transcription (Srbp1), ainsi que des gènes antioxydants (aldéhyde oxydase 1 (Aox1), glutathion S-transférase A4 (Gst4), NAD(P)H quinone déshydrogénase 1 (Nqo1), Nrf2 et peroxirédoxine 1 (Prdx1), et une diminution niveaux d'IL-6 et de TNF- [12].

L’effet de l’acide punicique sur les PPAR est également lié au métabolisme des HDL. Les lapins supplémentés avec de la grenade microencapsulée ont montré une composition lipidique modifiée en particules HDL. PPAR et PPAR peuvent remodeler la structure des HDL grâce à la régulation de l'expression de gènes liés au métabolisme des HDL [86].
3.2.2. Participation de l'acide punicique à l'inhibition de l'hyperactivation de la calpaïne
Les calpaïnes sont des protéases à cystéine dépendantes du calcium qui ont été impliquées dans plusieurs maladies neurodégénératives telles que la maladie d'Alzheimer et la maladie de Huntington. Les calpaïnes sont importantes pour la fonction synaptique et la neuroplasticité, car elles exercent un effet neuroprotecteur au niveau de l'expression des bases, tandis que la suractivation conduit à la neurotoxicité. La calpaïne-1 et la calpaïne-2sont abondantes dans le cerveau et leur hyperactivation est impliquée dans les stades avancés des maladies neurodégénératives (92).
La calpaïne-1 est surexprimée aux stades avancés de la maladie d'Alzheimer, générant des fragments toxiques de tau en réponse à un traitement global. La calpaïne-2, d'autre part, s'est avérée montrer une activité précoce accrue dans la pathogenèse de la maladie d'Alzheimer dans un modèle murin et était corrélée à une diminution de la fonction cognitive et à une augmentation de A dans les échantillons de tissus néocorticaux provenant de patients atteints de la maladie d'Alzheimer [92,93].
Les souris présentant une phénologie induite par la maladie de Machado-Joseph (MJD) présentaient une ligne de base du système calpaïne suractivée et entraînaient une augmentation de la mort cellulaire dans le cervelet. L'élimination de la calpaïne -2 chez les souris présentant une phénologie MJD induite a entraîné une réduction de la neurotoxicité et une augmentation de la survie des souris (94).
Les inhibiteurs de la calpaïne sont connus pour avoir des effets neuroprotecteurs ; par conséquent, les sociétés pharmaceutiques ont développé des inhibiteurs de la calpaïne comme médicaments thérapeutiques potentiels pour la maladie d'Alzheimer, entre autres MN [95].
Les effets d'inhibition de la calpaïne ont contribué aux effets neuroprotecteurs présentés par la nanoformulation PSO commercialisée sous le nom de produit GranaGard®. La formulation contient des niveaux élevés d'acide punicique et a entraîné l'arrêt de la maladie de Creutzfeldt-Jakob (MCJ) pendant 60 à 80 jours, suivi d'une progression plus lente de la maladie (88). Il a été constaté que cette même formulation réduisait la formation de A, l'accumulation de kinase 5 dépendante de la cycline (cdk5) et l'enzyme mitochondriale clé, le cytochrome c oxydase, chez les souris transgéniques (43).
De plus, des études de canard ont confirmé que le métabolite de l'acide punicique, le CLA, inhibe le site actif de la µ-calpaïne, exerçant des effets neuroprotecteurs contre H2O2 et induisant une dégradation A dans les lignées cellulaires de neuroblastome humain (96).
3.2.3. L'acide punicique a induit une expression plus élevée de GLUT4
Un autre phénomène courant dans plusieurs maladies neurodégénératives est une perturbation du métabolisme du glucose ainsi que de la fonction et de l'expression des transporteurs de glucose. Par exemple, un hypométabolisme du glucose dû à une diminution de l'expression des transporteurs de glucose dans le cerveau se produit dans la maladie d'Alzheimer [97].
De même, il est suggéré que les perturbations du métabolisme énergétique et du glucose jouent un rôle dans le développement de la pathologie de la maladie de Huntington [98]. Le cerveau humain exprime dix transporteurs de glucose indépendants du sodium (GLUT), qui, en conjonction avec les cotransporteurs de glucose dépendants du sodium (SGLT) et la protéine uniporter SWEET, sont responsables de l'absorption du glucose.
GLUT4 est un transporteur de glucose sensible à l'insuline exprimé dans l'hypothalamus, le cortex sensorimoteur, le cervelet, l'hippocampe et l'hypophyse. Son rôle physiologique est inconnu, mais certaines de ses fonctions suggérées sont son implication dans la détection du glucose, la modulation par l'insuline du transport du glucose dans des zones cérébrales distinctes et le transport du glucose, en cas de forte demande, vers les motoneurones (97, 98).

Dans la maladie d'Alzheimer, parallèlement à une diminution de l'absorption du glucose dans les zones hautement actives du cerveau telles que le cortex, l'hippocampe et les microvaisseaux cérébraux, les transporteurs de glucose (GLUT) diminuent [98,99]. Une expression altérée de GLUT-4 dans les neurones de l'hippocampe pourrait être liée à une perte de mémoire à court terme et à une désorientation chez les patients atteints de la maladie d'Alzheimer (100).
La supplémentation avec trois capsules quotidiennes de PSO chez 52 patients obèses atteints de diabète de type 2 a montré une augmentation de l'expression du gène GLUT-4 et une diminution de la glycémie à jeun [85]. De même, une augmentation de l’expression de l’ARNm et des protéines de GLUT4 a été observée dans les adipocytes 3T3-L1 traités à l’acide punique (83).
3.2.4. Effet de l'acide punicique sur les HDL et PON1
Un autre mécanisme lié aux maladies liées au stress oxydatif est l’altération de la paraoxonase 1 (PON1) dans le plasma circulatoire. La famille d'enzymes paraoxonase (PON) est un groupe de lactonases polymorphes avec une large spécificité de substrat qui possèdent de puissantes propriétés antioxydantes, anti-inflammatoires et anti-apoptotiques.
Ils sont fortement présents dans les HDL, et PON1 associé aux HDL aide à prévenir l'oxydation des LDL (101, 102). De faibles niveaux de cholestérol PON1 et HDL sont associés à une grande vulnérabilité aux dommages oxydatifs des lipides, des protéines et de l'ADN et à une réponse immuno-inflammatoire élevée.
La diminution de la teneur en PON1 est également liée aux effets neurotoxiques des voies immuno-inflammatoires et nitro-oxydatives chez les personnes souffrant de troubles neuroprogressifs tels que le trouble dépressif majeur, le trouble bipolaire et la schizophrénie (103). Dans les ND, des altérations du PON1 plasmatique circulatoire ont été rapportées [101]. De plus, la réduction des taux de PON1 est courante chez les patients atteints de MP par rapport aux personnes en bonne santé (104).
La grenade induit des modifications de la composition et de la fonctionnalité des lipides des lipoprotéines de haute densité (HDL). Les lapins ont été supplémentés pendant 30 jours avec de la grenade microencapsulée, ce qui a induit une augmentation du cholestérol HDL et des phospholipides HDL, une diminution des taux de sphingomyéline non HDL et une diminution de la teneur du rapport triglycérides-phospholipides. Il y a eu une augmentation de la fonctionnalité des HDL et une amélioration de la résistance à l'oxydation, probablement en raison d'une réduction des niveaux de triglycérides des HDL et d'une augmentation de l'activité PON1 [86].
Dans une étude similaire, des femmes atteintes du syndrome coronarien aigu ont reçu un supplément de grenade microencapsulée pendant 30 jours, ce qui a déplacé la distribution des grosses HDL vers des particules intermédiaires et de petite taille, et une diminution des valeurs des triglycérides et une augmentation de l'activité PON1 ont été observées. Le remodelage des HDL n'a pas modifié l'affinité de la lipoprotéine pour PON1 puisque l'activité de PON1 est restée constante avant ou après la supplémentation.
Cela signifie que l'activité PON1 plus élevée après une supplémentation en grenades est due à sa synthèse plus élevée (87). De plus, les isomères de CLA, en particulier c9 et t11, aident à protéger PON1 de l'oxydation et de la stabilisation oxydatives de manière dépendante de la concentration en se liant à un site de liaison spécifique sur une molécule PON1 (102).
Parce que la grenade microencapsulée est composée de nombreux composants nutraceutiques bénéfiques, dont l'acide punicique, de nouvelles études doivent être menées pour explorer l'effet direct de l'acide punicique sur PON1 et HDL. En résumé, l'acide punicique (PuA) peut agir comme (1) un agoniste des PPAR. , ce qui réduit la neuroinflammation et l'hyperphosphorylation de la protéine Tau et conduit moins à la formation et à l'agrégation d'A.
L'acide punicique réduit la formation d'A en (2) inhibant l'activation de la calpaïne et de la kinase 5 dépendante de la cycline (cdk5), limitant ainsi l'hyperphosphorylation de la protéine tau. De même, (3) PuA augmente l’expression de la protéine GLUT4, régulant le métabolisme cérébral du glucose, réduisant la résistance à l’insuline et réduisant l’hyperphosphorylation des protéines tau. Dans le cadre de ses puissants effets antioxydants, (4) le PuA a augmenté les propriétés anti-oxydantes de l'activité HDL et PON1, réduisant ainsi la génération de ROS et la peroxydation des lipides (Figure 6).

4. Remarques finales et perspectives futures
L'acide punicique est un composé nutraceutique important dans la prévention et le traitement des maladies neurodégénératives telles que la maladie d'Alzheimer, la maladie de Parkinson et la maladie de Huntington.
L'acide punicique peut diminuer les dommages oxydatifs et l'inflammation en augmentant l'expression des récepteurs activés par les proliférateurs de peroxysomes. De plus, il peut réduire la formation de dépôts bêta-amyloïdes et l’hyperphosphorylation de la protéine tau en augmentant l’expression de la protéine GLUT4 et l’inhibition de l’hyperactivation de la calpaïne. La grenade microencapsulée, avec des niveaux élevés d'acide punicique, augmente l'activité antioxydante PON1 dans les HDL.
De même, les formulations de grenade encapsulées avec des niveaux élevés d'acide punicique ont montré une augmentation de l'activité antioxydante PON1 dans les HDL. Cependant, l'acide punicique présente une très faible perméabilité à travers la barrière hémato-encéphalique, ce qui entraîne des effets très limités sur les troubles neurologiques.
Pour surmonter ce défi, les formulations ciblées sur le cerveau qui contournent la BHE ont de meilleurs résultats pour diminuer les symptômes de la ND, tels qu'une diminution de l'expression des gènes de la protéine précurseur amyloïde, le stress oxydatif et la neuroinflammation. Les futures études axées sur l'effet de l'acide punicique sur la neurodégénérescence doivent tenir compte de l'effet de la BHE sur la biodisponibilité cérébrale de la molécule bioactive et tenter de développer des mécanismes de délivrance spécifiques permettant d'exercer des effets localisés.
Contributions de l'auteur : Conceptualisation, MA-R. et DG-F.; enquête, CMG-V.; rédaction d'une ébauche originale, CMG-V.; rédaction-révision et édition, MA-R., MM-Á., DG-F. etC.MG-V.; visualisation, MA-R., DG-F. et MM-Á. Tous les auteurs ont lu et accepté la version publiée du manuscrit.
Financement : Ce travail a été soutenu par la bourse Claudia Melissa Guerra Vázquez du Consejo Nacional de Ciencia y Tecnología (CONACYT) [CVU1078786] et par l'École d'ingénierie et des sciences du Tecnológico de Monterrey.
Déclaration du comité d'examen institutionnel : sans objet.

Déclaration de consentement éclairé : sans objet.
Remerciements : Les auteurs remercient le Consejo Nacional de Ciencia y Tecnología (CONACYT), pour la bourse Claudia Melissa Guerra Vázquez [CVU 1078786] et les chaires de recherche en nutriomique et technologies émergentes et en bioprocédés du Tecnológico de Monterrey. Les figures ont été créées avec BioRender.com.
Conflits d'intérêts : Les auteurs ne déclarent aucun conflit d'intérêts.
Les références
1. Wyss-Coray, T. Vieillissement, neurodégénérescence et rajeunissement cérébral. Nature 2016, 539, 180-186. [Référence croisée] [PubMed]
2. Checkoway, H. ; Lundin, JI; Kelada, SN Maladies neurodégénératives. CIRC Sci. Pub. 2011, 163, 407-419.
3. Prince, M. ; Bryce, R. ; Albanais, E. ; Wimo, A. ; Ribeiro, W. ; Ferri, CP La prévalence mondiale de la démence : une revue systématique et une méta-analyse. Démence d'Alzheimer. 2013, 9, 63. [CrossRef] [PubMed]
4. Akbar, M. ; Chanson, B.-J. ; Essa, MM; Khan, M. Grenade : un fruit idéal pour la santé humaine. Int. J. Nutr. Pharma. Neurol. Dis.2015, 5, 141. [CrossRef]
5. Viuda-Martos, M. ; Fernández-López, J. ; Pérez-Álvarez, JA La grenade et ses nombreux composants fonctionnels liés à la santé humaine : une revue. Compr. Révérend Food Sci. Sécurité alimentaire. 2010, 9, 635-654. [Référence croisée] [PubMed]
6. Jalal, H. ; Copain, MA ; Hamdani, H. ; Rovida, M. ; Khan, NN Activité antioxydante des extraits d'écorces de grenade et de poudre de graines. J. Pharmacogn. Phytochimie. 2018, 7, 992-997.
7. Kyralan, M. ; Gölükcü, M. ; Tokgöz, H. Contenu en huile et en acide linolénique conjugué des graines d'importants cultivars de grenade (Punica Granatum L.) cultivés en Turquie. Confiture. Chimie pétrolière. Soc. 2009, 86, 985-990. [Référence croisée]
8. Peng, Y. Analyse comparative des composants biologiques des graines de grenade de différents cultivars. Int. J. Food Prop.2019, 22, 784-794. [Référence croisée]
9. Kaseke, T. ; Opara, UL; Fawole, OA Effets du prétraitement enzymatique des graines sur les propriétés physicochimiques, les composés bioactifs et l'activité antioxydante de l'huile de graines de grenade. Molécules 2021, 26, 4575. [CrossRef]
10. Shaban, Nouvelle-Zélande ; Talaat, IM ; Elrashidy, FH; Hégazy, AY; Sultan, AS Rôle thérapeutique de l'extrait d'huile de graines de Punica Granatum (grenade) sur le renouvellement osseux et la résorption induits chez les rats ovariectomisés. J. Nutr. Vieillissement en santé 2017, 21, 1299-1306.[CrossRef]
For more information:1950477648nn@gmail.com


