Potentiel neuroprotecteur de la chrysine : aperçus mécanistes et potentiel thérapeutique pour les troubles neurologiques
Mar 24, 2022
Contact:joanna.jia@wecistanche.com/ Whatsapp : 008618081934791
Cistanche a un très bon effet neuroprotecteur
1 Département de pharmacologie et de toxicologie, Institut national d'enseignement et de
Recherche (NIPER)—Guwahati, Changsari, Kamrup 781101, Assam, Inde
2Département de pharmacologie, École des sciences pharmaceutiques, Lovely Professional University, Phagwara 144411, Punjab, Inde ; ritambanerjee02@gmail.com (RB);navneet.18252@lpu.co.in (NK)3 Département de médecine nucléaire, Sanjay Gandhi Post Graduate Institute of Medical Sciences (SGPGIMS),
Lucknow 226014, Uttar Pradesh, Inde ; pragya.mishra640@gmail.com
4Département de chimie biologique, Faculté de médecine, Université nationale et kapodistrienne d'Athènes,
1152 Athènes, Grèce ; angelthal@med.uoa.gr(EA) ; cpiperi@med.uoa.gr(CP.)
s Force de recherche en neuropharmacologie, École de médecine et des sciences de la santé Jeffrey Cheah,
Université Monash Malaisie, Bandar Sunway 47500, Selangor, Malaisie ; yam.paudel@monash.edu Correspondance : awanish1985@gmail.com ; Tél. : plus 91-972-155-4158 ou plus 91-829-976-4600
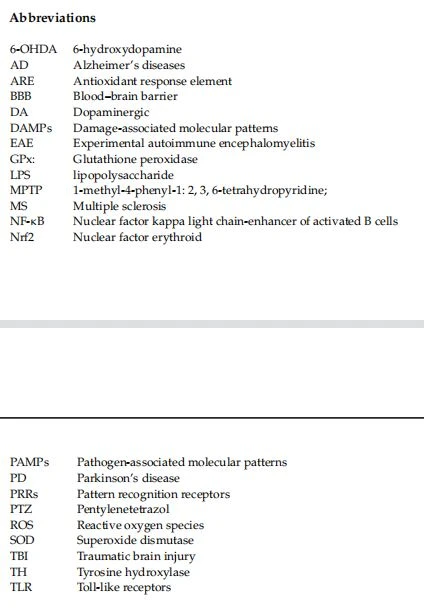
Résumé : La chrysine, une molécule bioactive à base de plantes, exerce une pléthore d'effets pharmacologiques, notamment des antioxydants, des anti-inflammatoires,neuroprotecteur, et anticancéreux. Un nombre croissant de preuves a mis en évidence le rôle émergent de la chrysine dans une variété deneurologiquetroubles, y compris la maladie d'Alzheimer et de Parkinson, l'épilepsie, la sclérose en plaques, les accidents vasculaires cérébraux ischémiques, les lésions cérébrales traumatiques et les tumeurs cérébrales. Sur la base des résultats d'études précliniques récentes et des preuves d'études chez l'homme, cette revue se concentre sur les mécanismes moléculaires sous-jacents à laneuroprotecteureffets de la chrysine dans différentsneurologiquemaladies. En outre, les défis potentiels et les opportunités de l'inclusion de la chrysine dans le répertoire neurothérapeutique sont discutés de manière critique.
Mots clés : chrysine ; antioxydant;neuroprotecteuragents;neurologiquetroubles; épilepsie; maladies neurodégénératives
1. Introduction
L'étude Global Burden of Disease (GBD) et les ressources de l'Organisation mondiale de la santé (OMS) rapportent que les effets globaux sur la santé desneurologiquetroubles ont été sous-estimés. Avec une augmentation constante de l'âge mondial de la population, l'augmentation de la charge mondiale deneurologiquepose un défi important au maintien des systèmes de soins de santé dans les pays en développement et développés. Des informations limitées sont disponibles concernant la prévalence, l'incidence et la charge de morbidité liées àneurologiquetroubles en Inde [1]. Au cours de la dernière décennie, l'incidence accrue deneurologiquea affecté négativement la qualité de vie, avec de graves conséquences socio-économiques. En raison de la contribution élevée des maladies liées aux blessures et non transmissiblesneurologiquetroubles, la recherche s'est concentrée sur le développement de stratégies de prise en charge adaptées. Le plus communneurologiqueles troubles comprennent les accidents vasculaires cérébraux, l'épilepsie, la maladie d'Alzheimer (MA), la maladie de Parkinson (MP), la sclérose en plaques (MS), la paralysie cérébrale, la tumeur cérébrale et les lésions cérébrales traumatiques (TBI), étant responsables de handicaps majeurs dans le monde [1-5 . La plupart des approches pharmacothérapeutiques actuellement disponibles ne procurent qu'un soulagement symptomatique. De plus, les effets indésirables médicamenteux compliquent souvent la prise en charge et détériorent encore la qualité de vie de ces patients. Par conséquent, au cours de la dernière décennie, la plupart des travaux de recherche se sont concentrés sur la recherche d'alternatives appropriées avec de meilleurs profils de sécurité. À cet égard, les aliments fonctionnels d'origine végétale dotés d'une grande variété de propriétés thérapeutiques et de sécurité ont suscité une attention croissante parmi les chercheurs. En général,
les métabolites secondaires des plantes, dont les alcaloïdes, les flavonoïdes, les saponines, les terpènes, etc., ont un potentiel thérapeutique. Les flavonoïdes sont des molécules bioactives, dérivées de diverses sources végétales et animales. Des milliers de flavonoïdes ont été signalés comme porteurs d'un large éventail d'avantages pour la santé [3,4,6].
Dans l'alimentation humaine, les flavonoïdes représentent le plus grand groupe de substances polyphénoliques d'origine végétale. En moyenne, la consommation alimentaire de flavonoïdes est d'environ 50 à 800 mg/jour. Comme cela a déjà été largement examiné ailleurs, les flavonoïdes exercent un rôle bénéfique sur la santé en raison de leurs propriétés anti-oxydantes, anti-inflammatoires, antivirales et anti-cancérigènes via plusieurs voies de signalisation cellulaire [7]. Les aliments riches en flavonoïdes, tels que le thé vert, le cacao et la myrtille, exercent des effets bénéfiques via les interactions des flavonoïdes avec plusieurs cibles moléculaires. Par exemple, il a été démontré que l'épigallocatéchine gallate (EGCG), séquestrée dans le vin rouge, le chocolat et le thé vert, inhibe l'apoptose neuronale induite par A et l'activité des caspases, favorisant la survie des neurones dans l'hippocampe [8]. De plus, une alimentation complétée par des mûres, enrichie en polyphénols, a été associée à une amélioration des performances motrices et cognitives chez des modèles de rats âgés [9]. Parmi les membres de la famille, la chrysine apparaît comme un flavonoïde naturel prometteur, présentant un éventail d'effets neuroprotecteurs en atténuant le stress oxydatif, la neuro-inflammation et l'apoptose [3,6,7]. La chrysine, également connue sous le nom d'acide chrysinique, appartient à la classe des flavones. Il est principalement obtenu à partir de miel, de propolis, de fruits et de légumes, principalement à partir de la plante Yerba Santa, Pelargonium crispum, Passiflora incarnate, scutellaire des marais et Oroxylem indicum. Il possède diverses propriétés pharmacologiques, notamment anti-inflammatoires, anti-tumorales, anti-asthmatiques, anti-hyperlipidémiques, cardioprotectrices,neuroprotecteur,et rénoprotecteur [3,8].
Bien qu'il existe plusieurs revues sur les rôles des flavonoïdes dans la santé et la maladie, nous abordons ici principalement leneuroprotecteureffets de la chrysine, en particulier dansneurologiquetroubles, sur la base des preuves précliniques accumulées, et discuter de son potentiel thérapeutique émergent ainsi que des limites qui doivent être surmontées pour son utilisation clinique efficace.
cistancheen hindi dansneuroprotecteur
2. Chimie et pharmacocinétique de la chrysine
La chrysine est constituée de deux cycles fusionnés (A et C) attachés à un cycle phényle (B) à la deuxième position du cycle C. De plus, aux positions 5 et 7 du cycle A, un groupe hydroxyle est attaché (Figure 1) [3]. Les polyphénols ne sont pas facilement absorbés, en particulier sous forme d'esters, de glycosides et de polymères. En raison de leur faible absorption et de leur taux élevé de métabolisme et d'élimination, ils possèdent une faible activité intrinsèque. Les polyphénols se dégradent en aglycones et en divers acides aromatiques après leur hydrolyse par les enzymes intestinales. Les aglycones sont des glycosides cardiaques, considérés comme les glycosides les plus puissants. Les flavonoïdes naturels sont métabolisés par des réactions de phase I et de phase II (conjugaison avec méthylation, sulfatation et glucuronidation) et sont éliminés de l'organisme.
Pour aborder les avantages pharmacologiques et la biodisponibilité de la chrysine, il est nécessaire de comprendre le rôle des transporteurs d'efflux et le devenir de ses métabolites. Il existe trois transporteurs principaux pour les conjugués de chrysine : (a) la protéine associée à la résistance multidrogue (MRP2), (b) la protéine de résistance au cancer du sein (BCRP) et (c) la cassette de liaison à l'ATP (ABC). MRP2, également connu sous le nom d'ABCC2, est un transporteur d'efflux de sevrage qui délivre des anions, y compris des conjugués de médicaments et de la bilirubine conjuguée. Il est principalement exprimé dans le foie, les reins et le placenta. Les métabolites de la chrysine sont transportés dans les cellules Caco-2 via MRP2 [10]. Ces conjugués peuvent être hydrolysés par les sulfatases et les glucuronides en chrysine après leur efflux dans l'intestin grêle. Des études utilisant des lignées cellulaires Caco-2 ont montré que la chrysine possède des propriétés de transport membranaire favorables [10]. Cependant, une grande quantité de chrysine inchangée dans les échantillons de selles indique sa mauvaise absorption intestinale. BCRP (également connu sous le nom d'ABCG2), un important transporteur d'efflux de la famille des protéines ABC pour les métabolites de phase 2 (conjugués de chrysine), est situé au niveau de la membrane apicale des entérocytes et des hépatocytes.
Il a été rapporté que l'inhibiteur d'anions, MK-571, réduit l'élimination des métabolites de la chrysine (conjugués glucuronide et sulfate) dans les cellules Caco-2, ce qui suggère que MRP2 peut inhiber l'efflux des conjugués glucuronide et sulfate de chrysine jusqu'à 71 %. [11]. La dose létale de chrysine par voie orale est de 4350 mg/kg [12].
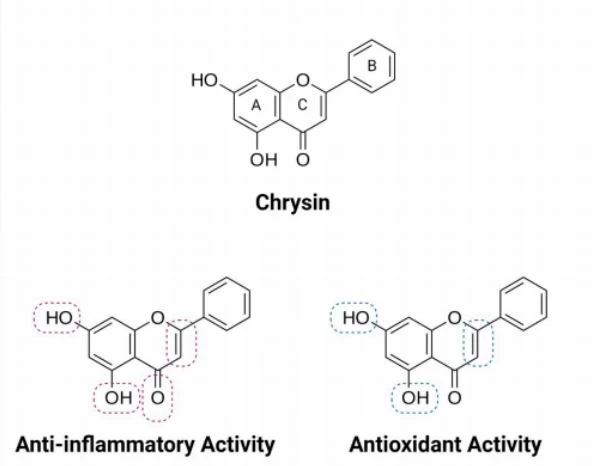
Figure 1. Structure chimique de la chrysine et pharmacophores importants pour l'activité anti-inflammatoire et antioxydante.
La principale limitation de la chrysine est sa faible biodisponibilité, principalement due à son métabolisme élevé. Il est largement métabolisé par l'intestin, le foie et plusieurs cellules cibles, via la conjugaison, la biotransformation et la production de glucuronides et de dérivés sulfatés. La chrysine affiche un très faible volume de distribution et sa biodisponibilité orale est d'environ {{0}},003–0,02 %. Les concentrations urinaires et plasmatiques des métabolites de la chrysine (sulfonate et glucuronide) sont très faibles, tandis que la bile contient les concentrations les plus élevées [13]. Cependant, des efforts significatifs sont actuellement déployés pour surmonter cette limitation, et sont discutés ci-dessous.
3. Mécanismes neuroprotecteurs potentiels de la chrysine
Il a été rapporté que la chrysine exerceneuroprotecteureffets à travers différents mécanismes, y compris les fonctions anti-oxydantes, anti-inflammatoires et anti-apoptotique, l'inhibition de la MAO et les propriétés mimétiques du GABA. Laneuroprotecteurmécanismes de la chrysine sont illustrés dans les figures 2 et 3.
3.1. Chrysine en tant qu'agent anti-oxydant
La chrysine est un flavonoïde, possédant un squelette diphényl propane (C6C3C6). Dans les études de relation structure-activité, il a été montré que le squelette diphényl propane (C6C3C6) et la position des substituants hydroxyle (-OH) sont très importants pour les activités anti-oxydantes et anti-inflammatoires de la chrysine (Figure 1). La substitution supplémentaire de ces groupes hydroxyle par des groupes méthoxy ou éthoxy entraîne des réductions des activités antioxydantes et anti-inflammatoires de la chrysine, tandis que C=C (entre les positions 2 et 3) est également important pour ces activités. Les pharmacophores importants de la chrysine et les activités biologiques correspondantes sont illustrés à la figure 1 [14].
Le facteur 2 lié au facteur nucléaire érythroïde 2- (Nrf2), un facteur de transcription important pour la médiation des effets antioxydants, est régulé positivement par la chrysine [15]. Lors de l'activation, Nrf2 se découple de Keap1 et migre vers le noyau, où il se lie à l'élément de réponse antioxydant (ARE) et active le traitement en aval de l'hème oxygénase-1 (HO-1) et NAD( P)H quinone oxydoréductase 1 (NQO-1) (Figure 3). La signalisation en aval de Nrf2 stimule la production de facteurs antioxydants (SOD, GSH et GST) et prévient ainsi les dommages cellulaires induits par le stress oxydatif [15].
Les principaux médiateurs du stress oxydatif impliquent différents types d'espèces réactives de l'oxygène (ROS) [16]. Lors d'un stress oxydatif, l'équilibre fin entre la production et l'élimination des ROS est perturbé, entraînant l'accumulation de ROS à l'intérieur de la cellule [16,17]. L'expression accrue de ROS à l'intérieur de la cellule entraîne une neurodégénérescence via une augmentation de la peroxydation lipidique, un dysfonctionnement mitochondrial et l'activation de la mort cellulaire apoptotique [18]. Chrysin exerce sonneuroprotecteureffet principalement en réduisant les niveaux de prooxydants (ROS et peroxydation lipidique) et en augmentant les facteurs de défense antioxydante (Figure 3) [19-23].
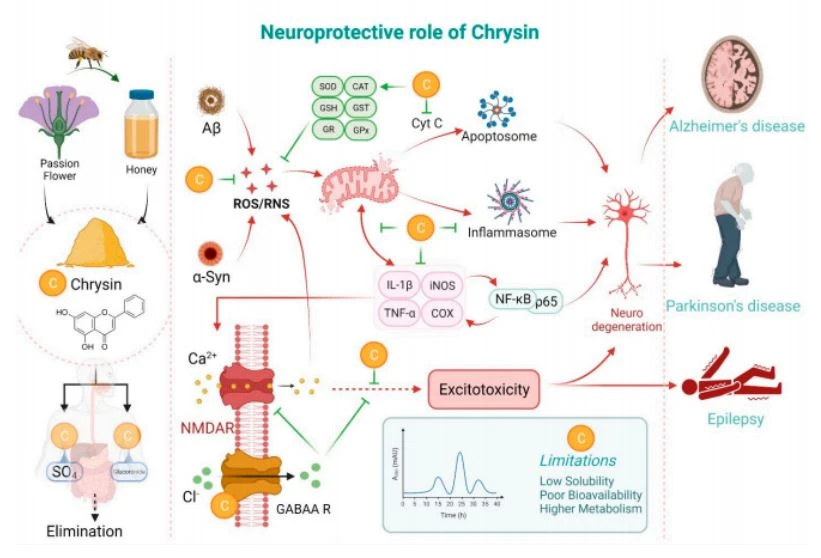
Figure 2. Effets de la chrysine dans les réseaux de signalisation associés à de multiples conditions neuropathologiques.
La chrysine peut également affecter indirectement le stress oxydatif à l'intérieur de la cellule en induisant l'expression de diverses enzymes antioxydantes clés (Figure 2), notamment la superoxyde dismutase (SOD), la catalase (CAT) et la glutathion peroxydase (GPx) [22,24–26]. . Parmi les trois isoformes de SOD présentes dans notre corps, SOD1 et SOD3 jouent les rôles les plus importants dans le mécanisme de défense antioxydant [27,28]. SOD, CAT et GPx présentent des fonctions antioxydantes en catalysant la dismutation du superoxyde hautement réactif en peroxyde d'hydrogène moins réactif (H2O2), générant de l'eau et une molécule de dioxygène à partir de H2O2, tout en inhibant la peroxydation lipidique [25,28-30]. Le glutathion (GSH), un tripeptide abondant dans le cytosol et les organites cellulaires, est oxydé en disulfure de glutathion (GSSG) et l'interconversion rapide GSH-GSSG-GSH maintient l'équilibre redox cellulaire [31]. Il a été démontré que la chrysine induisait l'expression du GSH, réduisant ainsi le stress oxydatif [32].

Figure 3. Modulation de la voie NRF-2 et NF-KB par la chrysine. Les ROS/RNS interviennent dans l'altération de la signalisation NRF-2 et s'interconnectent avec la voie de signalisation NF-KB. La signalisation NRF-2 active l'expression de protéines antioxydantes, à savoir l'hème oxygénase-1 (HO-1), la NAD(P)H quinone oxydoréductase 1 (NQO-1) et le glutamate - sous-unité catalytique de la cystéine ligase (GCLC, une enzyme limitant la vitesse de synthèse du glutathion). La dégradation de l'hème produit du monoxyde de carbone (CO), qui supprime l'activation de NF-KB sensible à l'oxydoréduction. Les sites d'action plausibles de la chrysine sont illustrés.
3.2. Chrysine comme agent anti-inflammatoire
L'inflammation est la réponse naturelle du corps à une blessure, une infection ou un traumatisme. Lors de l'induction, cela conduit à une cascade de réactions qui éliminent finalement les agents pathogènes envahisseurs et déclenchent le processus de cicatrisation ainsi que l'angiogenèse [33]. La première étape clé de la neuro-inflammation est l'activation des cellules microgliales [34]. L'activation de la microglie se produit principalement par l'activation de la kinase N-terminale c-Jun (JNK) et de la voie de signalisation du facteur nucléaire kappa light chain-enhancer des lymphocytes B activés (NF-KB) [35]. La signalisation NF-KB peut être aggravée par les molécules du modèle moléculaire associé aux pathogènes (PAMP)/modèle moléculaire associé aux dommages (DAMP) via les récepteurs de type Toll (TLR) et le récepteur des produits terminaux glyqués avancés (RAGE) [36]. Les voies effectrices en aval du NF-KB comprennent iNOS, la cyclooxygénase-2 (COX-2) et diverses cytokines pro-inflammatoires [37,38]. Il a été démontré que les niveaux accrus de cytokines pro-inflammatoires (IL-1, TNF- et prostaglandines) endommagent la barrière hémato-encéphalique (BHE) et induisent l'apoptose dans les cellules neuronales [39,40]. La détection des DAMP et des PAMP par les récepteurs de reconnaissance de formes (PRR) tels que les NLRP induit la formation d'agrégats protéiques conduisant finalement à la formation d'inflamosomes (Figure 2) [41]. Les inflamosomes induisent en outre la sécrétion de cytokines pro-inflammatoires, telles que IL-1, IL-18 et la pyroptose, entraînant une réponse cellulaire inflammatoire sévère [42,43].
Il a été démontré que l'activité anti-inflammatoire de la chrysine sertneuroprotecteuraprès une ischémie cérébrale via la modulation des récepteurs aux œstrogènes [44]. Il a également été rapporté que la chrysine module l'expression de JNK et NF-KB et limite ainsi la progression de la neuro-inflammation [35, 45–47]. Il a été démontré qu'il module l'expression de NF-KB via les voies PI3K/AKT/mTOR et NLRP3 et qu'il supprime la neuro-inflammation [45,48–50]. La chrysine peut également inhiber la neuro-inflammation via l'atténuation de la formation d'inflammosomes en atténuant la voie de signalisation NLRP3 [48,49]. D'autre part, la chrysine atténue directement les cytokines pro-inflammatoires (IL-1 , TNF- et prostaglandines) et exerceneuroprotecteureffets [46,47,51].
3.3. Chrysine en tant qu'agent anti-apoptotique
L'apoptose est un processus naturel de mort cellulaire, médié par deux mécanismes, à savoir les voies extrinsèque et intrinsèque (Elmore, 2007). La voie extrinsèque commence après la liaison de ligands, tels que Fas et TNF-, aux récepteurs de mort FasR et TNFR, respectivement (Figure 2) [52]. Cela induit des signaux de mort à l'intérieur de la cellule, conduisant à l'activation de la caspase -8, qui induit en outre l'activation de la caspase -3. À son tour, la caspase -3 déclenche un ensemble de réactions, connues sous le nom de voie d'exécution, qui conduisent finalement à l'apoptose [52–55]. D'autre part, la voie intrinsèque commence par l'action de divers stimuli externes, notamment les radiations, les toxines, l'hypoxie et le stress oxydatif, sur la cellule. Ceux-ci augmentent la perméabilité de la membrane mitochondriale et la libération de protéines pro-apoptotiques dans le cytosol [56,57]. Ces événements conduisent en outre à l'activation de la caspase-9, qui active finalement la caspase-3, activant ainsi la voie d'exécution [52,58]. Il a été démontré que le traitement à la chrysine réduit la neurodégénérescence en inhibant les voies extrinsèques, intrinsèques et d'exécution de l'apoptose et en atténuant l'expression du TNF-, de la caspase-3/8 et du stress oxydatif (Figure 2) [47,59–61] .
La famille de protéines BCL2 joue un rôle essentiel dans le contrôle et la régulation du processus apoptotique. Au cours de l'apoptose, l'expression des protéines anti-apoptotique (Bcl-2, Bcl-x, Bcl-XL, Bcl-XS, Bcl-w) est diminuée et l'expression des protéines pro-apoptotique (Bcl{{8} }, Bax, Bak, Bid, Bad, Bim, Bik et Blk) est augmenté [52]. Il avait été observé que l'administration de chrysine s'accompagnait d'une expression accrue de protéines anti-apoptotiques et d'une diminution de l'expression de protéines pro-apoptotiques [59–63]. Il a été démontré que la chrysine agissant sur le stade dérégulé des protéines liées à l'apoptose inhibe la mort neuronale des neurones granulaires cérébelleux chez la souris [61].
3.4. Chrysine comme inhibiteur de MAO
La dopamine (DA) est l'un des neurotransmetteurs les plus importants présents dans le cerveau. Des niveaux réduits de DA sont observés dans les régions cérébrales du striatum et de l'hippocampe des patients atteints de MP. La biosynthèse de la dopamine commence par l'hydroxylation de la tyrosine par la tyrosine hydroxylase, et via plusieurs réactions, elle est synthétisée et stockée à l'intérieur des vésicules synaptiques des neurones dopaminergiques [64]. Il a été démontré que la chrysine réduit la déplétion en dopamine et protège contre la neurodégénérescence des neurones dopaminergiques du cerveau [61,65]. Il a également été observé que le traitement à la chrysine peut induire de manière significative la récupération du niveau de dopamine dans l'hippocampe et la région du cortex préfrontal du cerveau [66].
Après sécrétion par les neurones, la dopamine est métabolisée par les enzymes MAO et COMT (en DOPAC et HVA) et, dans une certaine mesure, par l'alcool/aldéhyde déshydrogénase [64]. La chrysine inhibe l'activité MAO-A et MAO-B [61,67] et maintient les niveaux de dopamine dans le cerveau. De plus, son administration protège contre les modifications des niveaux de dopamine, de DOPAC et de HVA dans le cerveau des animaux induits par la MP [65, 68], soutenant le potentiel thérapeutique de la chrysine dans la MP.
3.5. Rôle neuroprotecteur de la chrysine via une action mimétique du GABA
Le GABA est le neurotransmetteur inhibiteur le plus important du cerveau. Il exhibe uneneuroprotecteureffet en inhibant les lésions cérébrales, les lésions neuronales, l'autophagie (via la régulation à la hausse du rapport Bcl-2/Bax et l'activation des molécules de signalisation AKT, GSK-3 et ERK) ainsi que la mort des cellules neuronales [69]. De cette façon, le GABA démontre un potentiel thérapeutique dans diversneurologiquetroubles [69,70]. La plupart des flavonoïdes, dont la chrysine, exercent un effet mimétique du GABA [71]. Il a été démontré que la chrysine module le récepteur GABAA et supprime ainsi les comportements anxieux et dépressifs [72–74]. Il peut donc agirneuroprotecteurvia la modulation de l'innervation GABAergique.
4. Rôle de la chrysine dans différents troubles neurologiques
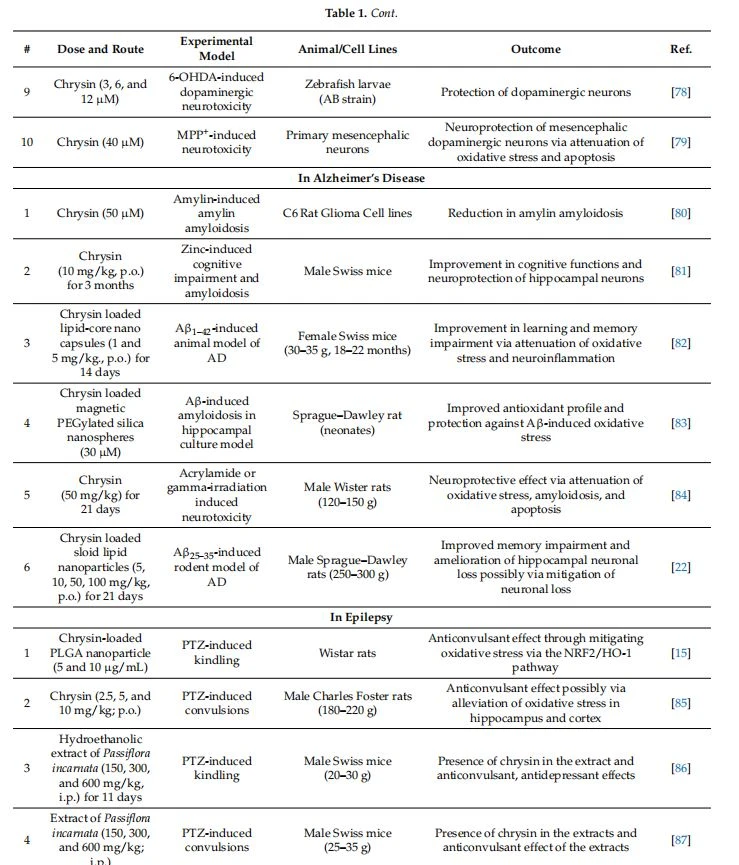
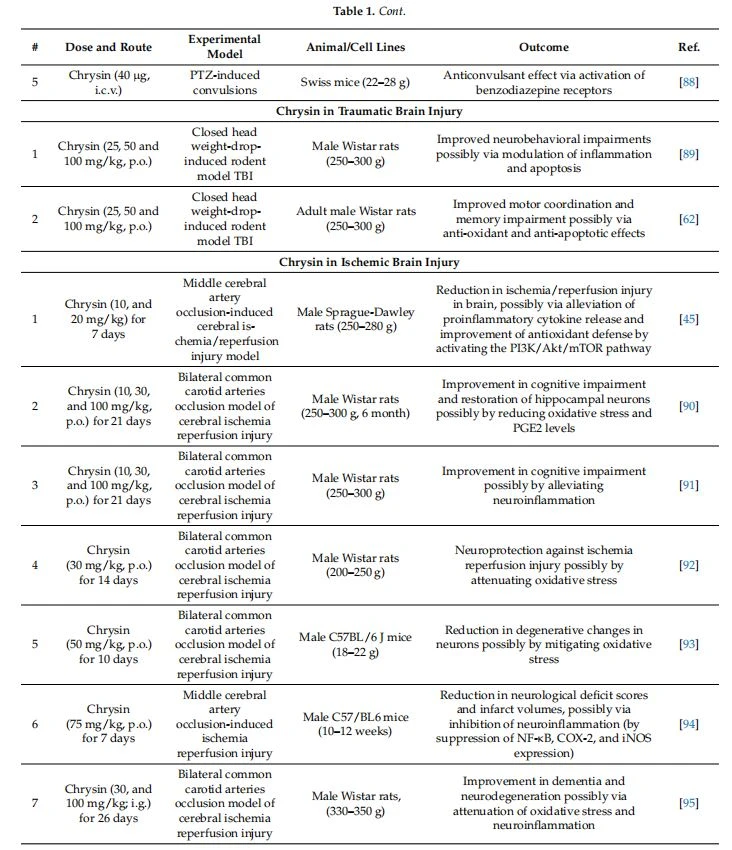
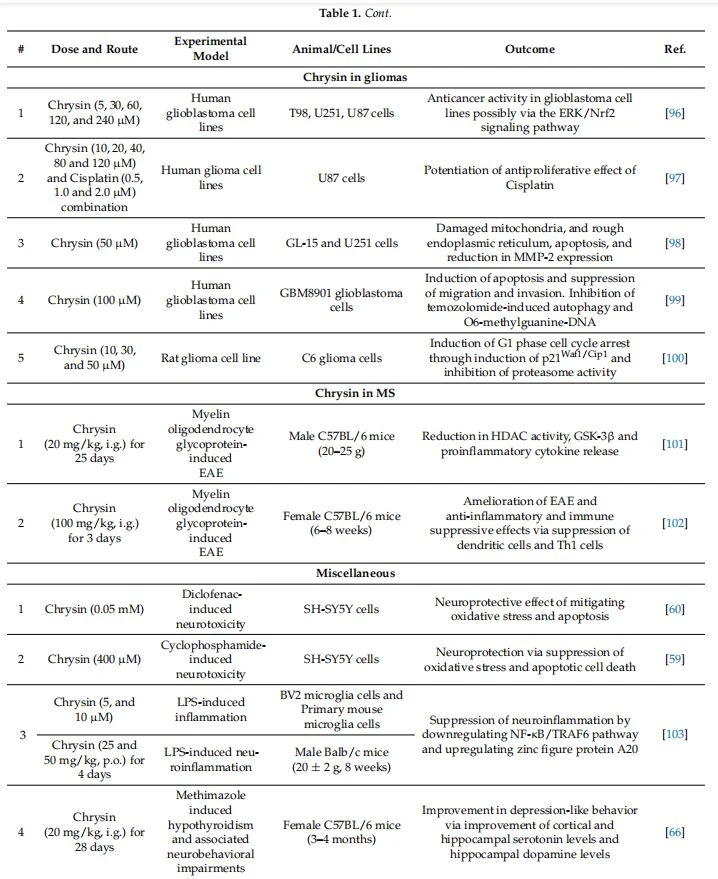
Laneuroprotecteurpotentiel de la chrysine a été largement exploré dans plusieursneurologiquetroubles. Une liste complète d'études soutenant le rôle de la chrysine dans différentsneurologiquetroubles est présentée dans le tableau 1.
Tableau 1. Les preuves expérimentales soutiennent laneuroprotecteurrôle de la chrysine dans diversneurologiquetroubles.


4.1. Chrysine dans AD
La MA est l'un des troubles neurodégénératifs progressifs les plus courants, caractérisé par la démence, tandis que l'oligomérisation de la bêta-amyloïde (A ) et l'hyperphosphorylation de la protéine tau sont considérées comme des caractéristiques pathologiques importantes. Ces agrégats de protéines anormaux initient diverses réponses cellulaires (neuro-inflammation, dysfonctionnement mitochondrial, altérations épigénétiques et modifications de la BHE) et conduisent finalement à la mort neuronale [108].
Des études ont montré que la chrysine peut exercer des effets bénéfiques dans des modèles de maladie d'Alzheimer. Le traitement d'animaux avec des nanosphères de silice PEGylées magnétiques chargées de chrysine a atténué les troubles de la mémoire induits par A, peut-être par la réduction des niveaux de peroxydation lipidique de l'hippocampe et l'élévation des molécules antioxydantes (GSH, GPX, catalase, SOD, GSH), permettant une neuroprotection [ 22, 83, 109]. Dans une autre étude, il a été démontré que la chrysine libre, ainsi que la CN-SLN, inversent les troubles d'apprentissage, ainsi que la réduction de la neuro-inflammation induite par A , en abaissant les expressions de IL-1 , IL{{8} }, et TNF- dans le cerveau [82]. Dans l'hypothyroïdie induite par le MTZ et la démence associée, il a été démontré que le traitement à la chrysine inverse la perte de mémoire en inversant la diminution du taux de glutamate et de l'activité Na plus / K plus -ATPase [110].
4.2. Chrysine dans PD
La MP est la deuxième maladie neurodégénérative la plus fréquente, caractérisée par des manifestations motrices (bradykinésie, rigidité, tremblements) et non motrices (douleurs, troubles vésicaux et intestinaux, dépression). La maladie chronique handicape souvent le patient avec une démarche traînante, un mauvais équilibre et des troubles cognitifs [5, 81].
Il a été démontré que la chrysine présente des effets bénéfiques dans divers modèles expérimentaux de MP. Dans le modèle expérimental de MP induit par 1-méthyl-4-phényl-1, 2, 3, 6-tétrahydropyridine (MPTP), le traitement à la chrysine a réduit la perte de neurones dopaminergiques, peut-être en atténuant l'apoptose via la modulation de la voie AKT/GSK3 et en restaurant le déséquilibre des protéines de la famille BCL2 [61]. Le traitement à la chrysine a également entraîné une réduction de la perte neuronale dopaminergique induite par l'6-hydroxydopamine (6-OHDA) dans les neurones dopaminergiques de la substantia nigra pars compacta, en atténuant le stress oxydatif grâce à l'activation du NRF2/HO{{14 }} voie et neuroinflammation [65,78]. La chrysine a restauré la perte neuronale dopaminergique striatale et amélioré le renouvellement de la dopamine dans le striatum [77], soutenant l'effet protecteur de la chrysine sur les fonctions motrices [76].
4.3. Chrysine dans l'épilepsie
L'épilepsie est une maladie dévastatriceneurologiquetrouble caractérisé par des crises récurrentes non provoquées, qui pourraient être attribuées à une activité neuronale aberrante. Le mécanisme pathologique de l'épilepsie n'est pas encore entièrement compris. Cependant, le déséquilibre de la neurotransmission excitatrice et inhibitrice dans le cerveau contribue peut-être à la génération et à la propagation des crises. De plus, les altérations de l'expression des canaux ioniques dans le cerveau sont considérées comme une cause sous-jacente plausible [111-113].
L'extrait hydroéthanolique de Passiflora incarnata L., sa forme aqueuse (PIAE), ainsi que l'extrait hydroéthanolique (PIHE) de Passiflora incarnata contiennent de la chrysine comme principe actif. Il a été démontré que leur administration réduisait le temps d'apparition des crises induites par le pentylènetétrazole (PTZ), ainsi que la gravité et la période d'immobilité [86,87]. L'administration de l'extrait éthanolique de fruits de Pyrus pashia (contenant de la chrysine comme ingrédient actif) a montré des effets anticonvulsivants dans les convulsions induites par le PTZ, ainsi que des effets antioxydants [85].
qu'est-ce qu'uncistanchepourParkinson
4.4. Chrysine dans la SEP
La SEP est une maladie relativement courante du système nerveux central, caractérisée par une démyélinisation inflammatoire. La gaine de myéline est essentielle à la protection des axones neuronaux du cerveau et de la moelle épinière, et la SEP est considérée comme une maladie auto-immune. Le modèle animal utilisé pour imiter la pathogenèse de la SEP et l'étude des interventions thérapeutiques est le modèle expérimental d'encéphalomyélite auto-immune (EAE). Il a été démontré que l'administration de chrysine dans des modèles de maladie animale SEP améliore les scores cliniques. De plus, les inhibiteurs d'histone désacétylase (HDACi) ont été proposés comme agents potentiels efficaces dans les maladies neuro-inflammatoires, y compris la SEP, en raison de leurneuroprotecteuret des effets immunosuppresseurs. La chrysine peut bloquer l'expression des HDAC et réduire la neuro-inflammation dans un modèle d'EAE [114]. Il provoque également une perte de poids, abaissant la cytotoxicité chez les animaux, ce qui suggère que l'inhibition de l'HDAC par la chrysine peut être bénéfique dans le modèle EAE du rongeur [93].
La chrysine peut également avoir des effets significatifs sur les DC humaines (cellules dendritiques). Il peut en outre éliminer les monocytes dans les cellules mononucléaires du sang périphérique (PBMC) in vitro et inhiber la production de cytokines inflammatoires, ainsi que l'activité métabolique des PBMC stimulées par le lipopolysaccharide (LPS). Il a en outre été démontré que la chrysine induisait des changements phénotypiques et fonctionnels chez les CD [94]. Collectivement, ces résultats suggèrent que les m-DC traitées à la chrysine pourraient avoir le potentiel de réduire les molécules costimulatrices HLA-DR et d'induire la prolifération des lymphocytes T. Par conséquent, il a été proposé que les effets inhibiteurs de la chrysine sur la présentation de l'antigène pourraient jouer un rôle vital dans la pathogenèse de l'EAE et de la SEP [109]. De plus, il a été rapporté que la chrysine inhibe l'expression de la molécule d'adhésion cellulaire vasculaire - 1 via l'inhibition de la signalisation NF-KB/MAPK, qui est également impliquée de manière significative dans la pathogenèse de la SEP [46].
4.5. Chrysine dans les lésions cérébrales traumatiques et ischémiques
Le TBI est considéré comme l'une des étiologies courantes deneurologiquetroubles. Il existe diverses caractéristiques cliniques du TBI, notamment une vigilance réduite, une attention, une perte de mémoire, des troubles de la vision, une faiblesse musculaire, etc. famille Bcl-2 et la régulation négative de la protéine Bax [62,89]. Dans une autre étude, la chrysine a soutenu l'atténuation de l'anxiété liée au TBI et des comportements de type dépressif. De plus, il a été démontré que le traitement à la chrysine (10 et 20 mg/kg) réduisait l'œdème cérébral après un AVC ischémique [89]. La chrysine a encore réduit les lésions post-ischémiques en atténuant l'expression des cytokines pro-inflammatoires (TNF- et IL -10), ainsi qu'en réduisant l'expression des protéines pro-apoptotique (Bax) et en augmentant l'expression des protéines anti-apoptotique (Bcl2), ainsi exercerneuroprotecteureffets [45,89].
4.6. Chrysine dans les gliomes
Les gliomes sont les tumeurs cérébrales les plus courantes causées par la prolifération aberrante des cellules gliales, survenant à la fois dans le cerveau et la moelle épinière. Les cellules gliales, y compris les astrocytes, les oligodendrocytes et la microglie, soutiennent la fonction neuronale. Il a été démontré que des composés présents dans la propolis, tels que CAPE et la chrysine, peuvent inhiber la voie de signalisation NF-KB, un axe de signalisation clé dans le développement et la progression du gliome [115]. De plus, il a été observé que l'extrait éthanolique de propolis interagit avec le complexe TMZ et peut inhiber la progression du glioblastome [115].
Le traitement à la chrysine arrête le cycle cellulaire du gliome en phase G1 en augmentant la protéine P21(waf1/cip1) et en activant P38-MAPK [100]. La chrysine associée à des extraits d'aiguilles de pin peut réguler la suppression de l'O-6-méthylguanine-ADN méthyltransférase (MGMT) et la signalisation AKT, qui jouent un rôle clé dans la gliomagenèse [99]. La chrysine a montré une plus grande activité anti-glioblastome par rapport à d'autres composés (PWE, pinocembrine, tiliroside) dans les cellules GBM8901. Il a été associé à une croissance réduite dans la plage de 25 à 100 uM de manière dépendante du temps dans les cellules GBM8901 [99]. Cependant, contrairement à d'autres composés, la chrysine n'a pas causé de dommages aux autres lignées cellulaires gliales (detroit551, NIH3T3, EOC13.31 et cellules gliales mixtes de rat), ce qui suggère qu'elle pourrait potentiellement afficher des propriétés anti-glioblastome spécifiques sans affecter les cellules normales. 99]. Le clivage de la caspase -3 et de la poly (ADP-ribose) polymérase (PARP) a été détecté lors du traitement à la chrysine, et il a été démontré qu'il réduisait la prolifération et induisait l'apoptose à des concentrations élevées [98].
4.7. Limitations possibles de la chrysine et stratégies d'atténuation
Les preuves précliniques appuient laneuroprotecteurrôle de la chrysine; cependant, les études cliniques sont limitées en raison de la faible biodisponibilité du composé [116,117]. La faible biodisponibilité (moins de 1 %) est principalement attribuée à sa faible solubilité aqueuse, ainsi qu'à son important métabolisme pré-systémique et de premier passage [118,119]. La majeure partie de la chrysine administrée reste non absorbée et est excrétée dans les fèces, ce qui prouve sa faible biodisponibilité [118,120-122]. Par conséquent, diverses approches visant à améliorer la biodisponibilité de la chrysine devraient être privilégiées. Chimiquement, l'échafaudage de base de la chrysine pourrait être modifié pour obtenir une meilleure biodisponibilité et stabilité métabolique, en conservant sonneuroprotecteurmécanismes. Les approches basées sur la formulation pour l'amélioration de la biodisponibilité cérébrale semblent appropriées tout en conservant ses mécanismes neuroprotecteurs.
Ces dernières années, les études se sont concentrées sur le développement de plusieurs formulations pour améliorer l'efficacité de la chrysine en surmontant le problème de faible biodisponibilité. Les approches de nanoformulation ont amélioré la biodisponibilité du cerveau. Il a été démontré que les nanoémulsions à base d'oléate de sodium chargées de chrysine inhibent la conjugaison glucuronide de premier passage de la chrysine et entraînent une augmentation de 4- fois de la concentration plasmatique maximale [119]. La formulation de nanoparticules de PLGA-PEG chargées de chrysine a amélioré l'absorption cellulaire de la chrysine dans les lignées cellulaires T47D et MCF7 [123]. De plus, des co-cristaux de chrysine ont été développés avec de la cytosine et du chlorhydrate de thiamine pour augmenter les taux de dissolution et de solubilité de 3-4- fois, et ainsi, l'absorption de la chrysine a été détectée comme étant améliorée dans les études in vivo et in vitro [124]. Le développement de nanoparticules lipidiques solides chargées de chrysine a entraîné une amélioration de la biodisponibilité orale et des effets similaires.neuroprotecteureffets à des doses plus faibles [125]. Récemment, le développement de transporteurs lipidiques nanostructurés (NLC) conjugués à la biotine chargés de chrysine a réussi à augmenter la concentration plasmatique maximale de chrysine de 5 à 8- fois [126]. Dans l'ensemble, l'approche de nanoformulation a amélioré la biodisponibilité et la stabilité métabolique, tout en conservant l'effet neuroprotecteur. De plus, la pertinence de cette approche pour l'amélioration de la biodisponibilité de la chrysine reste à établir dans une configuration clinique.
plante de cistanche
4.8. Conclusions et perspectives d'avenir
De nouvelles preuves précliniques ont suggéré que les flavonoïdes présentent une colonne vertébrale prometteuse pour le développement futur de médicaments liés à la gestion deneurologiquemaladies. La chrysine est devenue un flavonoïde efficace et a fait l'objet de nombreuses recherches. LaneuroprotecteurL'effet de la chrysine a été démontré par son potentiel anti-oxydant, anti-inflammatoire, anti-apoptotique et inhibiteur de la MAO. Malgré plusieurs études précliniques mettant en évidence le rôle plausible de la chrysine dans diversneurologiquetroubles, les preuves cliniques font actuellement défaut, principalement en raison de sa faible biodisponibilité et stabilité métabolique. Le développement d'analogues synthétiques de la chrysine et de nanoformulations peut être une stratégie prometteuse pour surmonter les défis pharmacocinétiques associés à la chrysine. La poursuite du développement de nanoformulations spécifiques ciblant le cerveau et l'administration intranasale de chrysine pourraient présenter des avantages supplémentaires pour améliorer la biodisponibilité cérébrale, contourner l'effet de premier passage et jeter les bases de futures investigations cliniques.
Contributions des auteurs : Conceptualisation, AM et EA ; méthodologie, RB, PSM, AM ; analyse formelle, AM, NK ; enquête, RB, AM ; ressources, RB, PSM ; conservation des données, AM, RB ; rédaction—préparation du brouillon original, AM, RB, PSM ; rédaction—révision et édition, CP, YNP, EA ; visualisation, AM ; supervision, AM, EA, CP Tous les auteurs ont lu et accepté la version publiée du manuscrit.
Financement : Ce travail n'a reçu aucun financement externe.
Déclaration du comité d'examen institutionnel : sans objet.
Déclaration de consentement éclairé : non applicable.
Déclaration sur la disponibilité des données : Aucune nouvelle donnée n'a été créée ou analysée dans cette étude. Le partage de données ne s'applique pas à cet article.
Remerciements: L'auteur (AM) tient à remercier le Département des produits pharmaceutiques, Ministère des produits chimiques et des engrais, Govt. of India, et National Institute of Pharmaceutical Education and Research (NIPER), Guwahati, pour l'infrastructure et les installations nécessaires. Les images ont été "créées avec BioRender.com".
Conflits d'intérêt : Les auteurs déclarent qu'il n'y a aucun conflit d'intérêt lié à ce travail.