Partie 1 Heme Oxygenase 1 : Un médiateur défensif dans les maladies rénales
Mar 20, 2022
Partie 1
Anne Grunenwald1, Lubka T. Roumenina1et Marie Frimat 2,3,*
Résumé:L'incidence deun reinla maladie est en augmentation, constituant une charge importante pour le système de santé et rendant de plus en plus urgente l'identification de nouvelles cibles thérapeutiques. Le système de l'hème oxygénase (HO) remplit une fonction importante dans la régulation du stress oxydatif et de l'inflammation et, via ces mécanismes, jouerait un rôle dans la prévention des lésions non spécifiques consécutives à une insuffisance rénale aiguë ou résultant d'une maladie rénale chronique. L'expression de HO-1 est fortement inductible par une large gamme de stimuli dans leun rein, en raison du rôle de filtration du rein, ce qui signifie que HO -1 est exposé à un large éventail de molécules endogènes et exogènes, et il s'est avéré protecteur dans une variété de modèles animaux neuropathologiques. Fait intéressant, l'effet positif de HO -1 se produit à la fois dans les maladies dominées par l'hémolyse et la rhabdomyolyse, où leun reinest largement exposé à l'hème (un inducteur majeur de HO-1), ainsi qu'à des maladies non dépendantes de l'hème telles que l'hypertension, la néphropathie diabétique ou la progression vers une insuffisance rénale terminale. Cela met en évidence la complexité des fonctions de HO-1, qui est également illustrée par le fait que, malgré l'abondance de données précliniques, aucun médicament ciblant HO-1 n'a jusqu'à présent été traduit en utilisation clinique. L'objectif de cette revue est d'évaluer les connaissances actuelles relatives au rôle de HO-1 dans le rein et son intérêt potentiel en tant qu'agent de néphroprotection. Les ouvertures thérapeutiques potentielles seront présentées, notamment à travers l'identification d'essais cliniques ciblant cette enzyme ou ses produits.
Mots clés:hème-oxygénase-1 ; hème;un rein; hémolyse; rhabdomyolyse; toxicité; ischémie-reperfusion
Contact :ali.ma@wecistanche.com

Bénéfice de l'extrait de Cistanche pour les maladies rénales, cliquez ici pour obtenir l'échantillon
1. Introduction
Le nombre de personnes dans le monde atteintes de maladies chroniquesun rein(IRC), une insuffisance rénale aiguë (IRA) ou nécessitant une thérapie de remplacement rénal dépasse 850 millions [1]. L'incidence prévue est préoccupante, l'IRC devant devenir la cinquième cause de décès dans le monde d'ici 2040 [2]. Il est généralement admis queun reinconstituent un enjeu de santé publique important et qu'il est urgent d'adopter une approche multimodale pour freiner cette évolution présumée [3]. L'identification de nouvelles cibles thérapeutiques est d'une importance capitale, à la fois pour limiter l'impact des événements rénaux aigus et pour améliorer les mauvais résultats dans l'IRC, dans l'éventail des étiologies sous-jacentes. Plusieurs candidats à la néphroprotection sont actuellement à l'étude [4,5]. Le système de l'hème oxygénase (HO) est l'une des cibles qui pourraient être utilisées pour protéger les structures rénales des dommages causés par le stress oxydatif, limitant l'inflammation et par conséquent le vieillissement accéléré.
HO a été découvert en 1968 par Tenhunen et ses collègues, qui ont décrit pour la première fois sa capacité à catalyser la dégradation de l'hème (Fe-protoporphyrine IX) en fer libre, en monoxyde de carbone (CO) et en biliverdine, qui est rapidement convertie en bilirubine [6]. Deux isoformes principales de HO ont été décrites : HO inductible-1 et HO constitutive-2. Initialement simplement considéré comme un système de recyclage de l'hème à partir de globules rouges âgés, HO s'est depuis vu attribuer un certain nombre de propriétés cytoprotectrices via ses métabolites et sa signalisation en aval, élargissant sa définition de celle d'une "boule de démolition moléculaire" à un déclencheur "envoûtant" de événements cellulaires, pour citer Maines et al. [sept]
Portée par ses potentielles capacités antioxydantes et anti-inflammatoires, HO-1 fait l'objet d'un intérêt croissant pour son rôle dans différentes pathologies humaines. Parmi les organes étudiés, le rein a souvent été mis en évidence au cours des 30 dernières années, notamment à travers l'identification d'un rôle pour HO-1 dans diverses maladies rénales, métaboliques et vasculaires à la fois aiguës et chroniques [8–11 ]. HO-1 est essentiel pour uneun reinfonction, comme l'illustrent les lésions rénales chez l'homme présentant une déficience en HO-1 et par de nombreuses études animales (décrites ci-dessous). Lareinsles fonctions physiologiques influencent spécifiquement la régulation de HO-1. En effet, le tissu rénal est très sensible à l'hypoxie [12], moteur majeur de l'expression de HO-1, et est particulièrement exposé aux molécules toxiques en raison de ses fonctions de filtration et de réabsorption. Cette particularité d'être un organe de « détoxification », partagé avec le foie, signifie que le rein est fortement exposé aux modèles moléculaires associés aux dommages (DAMP) et aux médiateurs de stress. Fait intéressant, leun reinpossède une capacité de synthèse d'albumine, de protéine alpha et d'haptoglobine sous atteinte ischémique ou ischémique toxique, soulignant le parallèle avec le foie [13,14]. Les cellules rénales nécessitent donc des stratégies d'adaptation pour préserver leurs fonctions et leur intégrité dans un environnement aussi hostile. Le rein est un site majeur d'exposition à l'hème en cas d'hémolyse extravasculaire ou de rhabdomyolyse, et donc également pour l'induction de l'expression de HO-1. Dans ces conditions, la surexpression de HO-1 s'explique facilement par la nécessité de cataboliser la surcharge en hème libre. Cependant, l'implication de HO-1 dans les maladies rénales dépasse le cadre des maladies liées à l'hème, illustrant la complexité de ses mécanismes d'action qui vont au-delà du seul catabolisme de l'hème [15].
Le but de cette revue est de résumer la grande quantité de données expérimentales et cliniques décrivant l'importance de HO-1 dans leun rein, sans oublier que HO-2 a aussi son importance : exprimée constitutivement dans le rein en conditions homéostatiques, elle est en première ligne de défense contre l'ischémie et autres agressions, et ses effets cytoprotecteurs rénaux ont été démontrés dans les protéines hémiques et IRA induite par l'ischémie [16]. Cependant, par rapport à la littérature sur HO-1, il existe très peu d'études examinant l'importance fonctionnelle de HO-2 dans les maladies rénales ; par conséquent, cet examen se concentrera sur HO-1. Après une introduction générale aux caractéristiques de HO-1 dans le rein, nous décrirons le rôle de cette enzyme dans différentes populations de cellules rénales et dans les maladies rénales. Compte tenu de sa fonction première de recyclage de l'hème, nous aborderons ces états pathologiques selon qu'il y a ou non libération massive d'hème libre. Enfin, les applications cliniques actuelles seront présentées, révélant l'écart entre la profusion des données expérimentales disponibles et la relative rareté des applications thérapeutiques.

2. À propos de l'hème oxygénase-1 dans le rein
2.1. Pourquoi HO-1 est-il particulièrement important pour le rein ?
Au cours des dernières décennies, le rôle clé du système HO-1 dans la physiopathologie deun reinmaladies a été étayée par plusieurs études. Chez les deux patients déficients en HO-1-rapportés à ce jour, le rein figurait parmi les organes endommagés. Les deux patients avaient une hématurie et une protéinurie.Un reinles biopsies ont révélé une prolifération mésangiale accrue et un épaississement focal des anses capillaires en microscopie optique, et un décollement endothélial dans le capillaire glomérulaire en microscopie électronique [17,18]. Des lésions rénales étaient également présentes dans les deux modèles animaux invalidés pour HMOX1, avec quelques différences apparentes entre les modèles souris [19] et rat [20]. Chez les souris Hmox1-/-, le manque d'hème oxygénase fonctionnelle était responsable d'une susceptibilité accrue au stress oxydatif [19], d'une diminution de l'hémophagocytose des globules rouges sénescents par les macrophages tissulaires, d'une hémolyse accrue et de la redistribution du fer à partir des voies splénique et hépatique. macrophages aux hépatocytes et aux cellules du tubule rénal proximal [21]. De même, les rats Hmox1-/- présentaient une anémie, une splénomégalie et des infiltrats proéminents de cellules inflammatoires interstitielles et des cicatrices de fibrose dans leurs reins. Alors que les lésions glomérulaires étaient anecdotiques dans le modèle murin, Atsaves et al. ont constaté une augmentation de la matrice mésangiale et des lésions de glomérulosclérose focale et segmentaire chez les rats Hmox1-/-. Ces résultats morphologiques étaient associés à une augmentation de l'urée sanguine, de la créatinine sérique et de l'albuminurie, mais il n'y avait pas d'augmentation des dépôts de fer dans les glomérules, les tubules ou l'interstitium [20].
Des lésions rénales spontanées dans des modèles humains et animaux invalidés pour HMOX suggèrent que HO -1 est important pour une fonction rénale efficace. Le rôle protecteur rénal de cette enzyme a été confirmé dans de multiples modèles de provocation rénale dans des conditions d'invalidation/inhibition ou de surexpression de HO-1 [22]. Cependant, les différences histologiques citées ci-dessus illustrent les difficultés de transposition des résultats d'une espèce à l'autre. Les différences dans la régulation de HO-1 entre les humains et les souris sont bien décrites, motivant la génération de souris transgéniques humaines hHO-1 BAC [23]. Dans ce modèle, HO-1 est surexprimé, et on ne sait pas si cette expression de fond plus élevée peut masquer des dommages subtils sur de longues périodes de temps, ou même avoir des effets indésirables elle-même.
Une meilleure compréhension du fonctionnement de HO-1 dans leun rein, et comment son expression ou sa fonction est contrôlée, est essentielle pour notre compréhension deun reinphysiologie et pathologie mais il est (comme toujours) important de rappeler les limites de toute étude dans son interprétation et sa traduction : nous tenterons de soutenir ce point de vue critique tout au long de cette revue.
2.2. Régulation de l'expression de HO-1 dans les reins
La protéine HO-1 est omniprésente, étant ancrée dans la membrane du réticulum endoplasmique et également localisée dans les noyaux mitochondriaux et la cavéoline, tandis que le gène HO-1 (HMOX1), qui code HO-1, est situé sur le chromosome 22. De nombreux stimuli peuvent moduler la transcription de HMOX1, reflétant le large spectre de motifs de liaison à l'ADN au sein de son promoteur et le grand nombre de voies de signalisation qui conduisent à sa transcription. Le principal régulateur du gène HMOX1 est le facteur 2 érythroïde nucléaire (Nrf2), dont l'activation dépend de son interaction avec la protéine associée à l'ECH de type Kelch (Keap1). L'interaction Keap-Nrf2 favorise la dégradation de Nrf2 (état sain), tandis que la déstabilisation de ce complexe libère Nrf2 qui se transloque dans le noyau et régule à la hausse certains gènes, dont HO -1 (état stressé). Il existe de nombreux autres activateurs ou répresseurs de HO-1 formant un réseau biomoléculaire complexe (détaillé dans des revues précédentes [7,10]). Les détails à ce sujet dépassent le cadre de cette revue et nous nous concentrerons ici sur les caractéristiques rénales spécifiques de l'expression de HO-1.
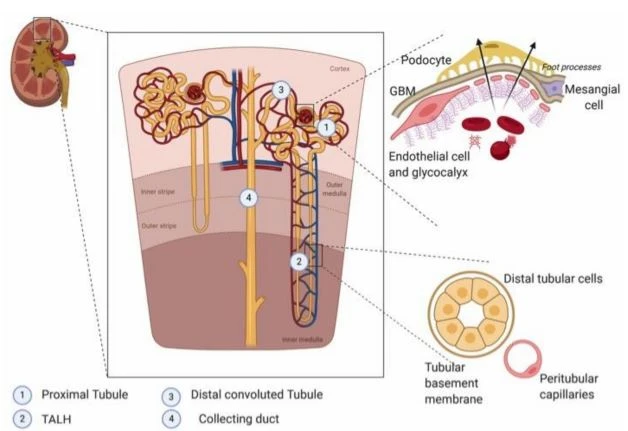
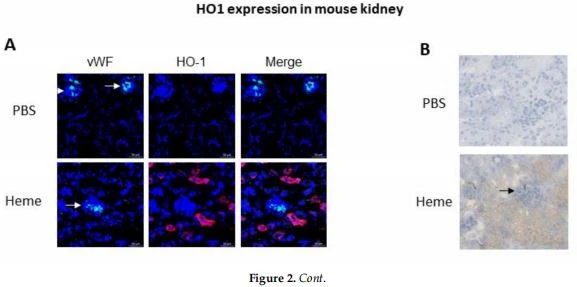
Dans leun rein, le taux de protéine HO-1 est indétectable en conditions homéostatiques, sauf dans les tubules où il reste néanmoins faible [24]. De nombreuses conditions de stress sont connues pour réguler à la hausse la transcription rénale HO -1, y compris le stress oxydatif, le choc thermique, l'hypoxie, les métaux lourds et les toxines (revue dans Bolisetty et al. [8]). Dans ces conditions, l'expression de HO-1 reste hétérogène entre les différents compartiments rénaux. Le rein se compose de deux zones principales : le cortex de sortie et la moelle dans la région la plus interne. La moelle contient la majeure partie de la longueur des néphrons, les composants fonctionnels du rein qui filtrent le liquide du sang. Le cortex rénal comprend les glomérules, ces « touffes » de capillaires où le plasma est filtré à travers la membrane basale glomérulaire. Le liquide filtré s'écoule ensuite le long du tubule contourné proximal jusqu'à l'anse de Henle, puis vers le tubule contourné distal et les canaux collecteurs, qui se déversent dans l'uretère (Figure 1). La filtration glomérulaire et la réabsorption des solutés (les deux fonctions principales du rein) sont soutenues par le débit sanguin rénal, qui est parmi les plus élevés du corps, les reins recevant environ 20 à 25 % du débit cardiaque. Comparé au cortex, le flux sanguin vers la médullaire rénale est relativement faible. Cette disparité est nécessaire pour permettre un mécanisme efficace de concentration de l'urine et explique également la sensibilité particulière de la moelle à la diminution du flux sanguin. Dans des conditions de stress, HO-1 est donc plus fortement exprimé dans la moelle que dans le cortex [25]. Son expression est très forte dans les tubules (en particulier les tubules proximaux), mais minime ou absente dans les glomérules, comme l'illustre la figure 2 chez les patients hémolytiques et les souris ayant reçu une injection d'hème. Cependant, il a été démontré que l'induction préalable de HO -1 dans les glomérules empêchait le développement ultérieur d'une glomérulonéphrite néphrotoxique dans un modèle de rat de Lewis, mais le principal producteur de HO -1 dans les glomérules était les macrophages infiltrants, pas les cellules glomérulaires intrinsèques [26]. Cette plus faible capacité des glomérules à exprimer HO-1, qui est un mécanisme clé de cytoprotection, pourrait expliquer la sensibilité particulière des glomérules aux facteurs de stress dans certaines pathologies [27].
Prises ensemble, ces données montrent que les niveaux de HO-1 sont normalement indétectables dans leun reinmais que HO-1 est fortement inductible dans les tubules lors de pathologies, notamment via son principal facteur de transcription Nrf2. La capacité des glomérules à induire HO -1 est cependant plus faible.

2.3. HO-1 et Néphroprotection
Comme HO -2, HO -1 entraîne l'ajout dépendant du NADPH d'une molécule d'oxygène au cycle porphyrine de l'hème, catalysant ainsi l'oxydation de l'hème et la libération équimolaire de biliverdine, de fer libre et d'oxyde de carbone (CO). Tous ces événements sont cytoprotecteurs en éliminant l'hème libre, en régulant l'efflux de fer et en augmentant les niveaux de bilirubine et de CO. En effet, les effets nocifs de l'hème libre sont bien décrits, notamment au niveau du site vasculaire via une toxicité directe, mais aussi via la stimulation des voies de signalisation pro-inflammatoires (comme les DAMP) et l'activation du système du complément [28]. Semblables aux cellules endothéliales, de tels effets indésirables sont signalés avec d'autres types de cellules lorsqu'elles sont massivement exposées à l'hème. C'est le cas des fibres musculaires squelettiques humaines, dans lesquelles l'exposition à l'hème induit un dysfonctionnement contractile [29], et des cellules tubulaires rénales [30]. De plus, le fer est particulièrement toxique même à de faibles concentrations. Il participe à la réaction de Fenton, produisant de l'hydroxyle, et peut entraîner la mort cellulaire par ferroptose, une voie de mort cellulaire caractérisée par une diminution dépendante du fer des niveaux de glutathion (GSH) et l'accumulation d'hydroperoxydes lipidiques à des niveaux létaux [31]. Ainsi, il a été rapporté que la cytoprotection de HO-1 était due, au moins en partie, à une augmentation du flux de fer [32], qui après sa libération est soit stocké dans la ferritine, soit exporté des macrophages vers le plasma pour ré -utilisation via l'exportateur ferreux transmembranaire ferroportine. Le CO neutralise la vasoconstriction et possède de puissantes propriétés antioxydantes, tout comme la biliverdine, qui est convertie par voie enzymatique en bilirubine via la biliverdine réductase [33].
En transposant ces propriétés au niveau rénal, on comprend aisément l'intérêt de la recherche à exploiter cette molécule pour traiterun reinmaladie. Les effets positifs ont été décrits depuis près de 30 ans, à la suite des travaux de Nath et al., qui ont rapporté que HO -1 conférait une protection dans un modèle de rat d'insuffisance rénale aiguë induite par le glycérol. Dans leur modèle, une seule injection préalable d'hémoglobine a rapidement induit l'ARN messager et la protéine HO-1 dans le rein, ce qui a empêché la progression vers l'insuffisance rénale [34]. Les effets néphroprotecteurs de HO-1 et de ses métabolites ont depuis été rapportés dans différents modèles de maladie rénale [8,35]. L'importance potentielle de HO-1 dans la pathogenèse des maladies rénales est également suggérée par le lien entre les polymorphismes du gène HO-1 et les résultats rénaux. Les individus avec des répétitions (GT)n plus courtes dans la région promotrice HO-1 ont une activité transcriptionnelle plus élevée et donc des niveaux de HO-1 plus élevés que les individus avec des répétitions (GT)n plus longues [36]. Il est intéressant de noter que les répétitions longues (GT)n ont été associées à un pronostic plus sombre dans plusieurs contextes, à savoir un risque plus élevé d'IRA après une chirurgie cardiaque ou une diminution de la fonction rénale après une transplantation rénale [37,38]. Cependant, il n'y a pas de preuve d'un effet protecteur de la courte répétition (GT)n pour la survie du greffon ou du receveur après transplantation rénale [39], soulignant la complexité des mécanismes impliqués. Les niveaux d'expression de HO-1 peuvent également varier avec l'âge. L'expression rénale du gène HO-1 chez les souris C57Bl6 témoins était significativement diminuée à 18 ans par rapport à 3 mois [40]. Dans une autre étude, l'expression de la protéine HO -1 n'était pas significativement différente au départ entre les souris âgées de 6 à 8- semaines et les souris âgées de 1- ans, mais la capacité des animaux plus âgés à réguler positivement l'HO -1 en réponse aux lésions d'ischémie-reperfusion (IRI) était altérée (en particulier dans la moelle épinière), et ils présentaient une fonction rénale moins bonne que les jeunes animaux [41]. Ces résultats font écho à la sensibilité rénale des personnes âgées aux agents néphrotoxiques.
Pour résumer, il a été démontré dans de nombreuses études que l'induction préventive ou génétique de l'expression de HO-1 confère une protection rénale. Une diminution de l'expression rénale de HO-1 peut contribuer à lareinssensibilité à certaines pathologies.
3. HO-1 dans les populations de cellules rénales
Des analyses comparatives ont révélé que HO-1 n'est pas exprimé dans la même mesure dans les populations cellulaires distinctes de laun reinpour un stimulus donné (Figure 1). Au cours de l'hémolyse intravasculaire ou en présence de stimuli de stress induisant HO-1- ou de médicaments dans la circulation, les cellules endothéliales sont les premières cellules à être sollicitées par ces facteurs de stress systémiques. Si le facteur de stress est filtré dans les glomérules, les podocytes sont exposés et peuvent être endommagés, comme on le voit dans la néphropathie diabétique. De plus, le facteur de stress pourrait rencontrer des cellules mésangiales qui ont un rôle de sécrétion et d'immunomodulation et qui prolifèrent lors d'un déficit en HO-1. Enfin, le stresseur peut atteindre l'épithélium tubulaire qui est le type cellulaire le plus étudié par rapport à HO-1 (les tubules proximaux et distaux doivent être considérés séparément par rapport à l'épithélium). Les cellules épithéliales tubulaires ont la capacité la plus puissante à surexprimer HO -1 et subissent les lésions les plus graves en cas de déficience ou lors d'hémolyse et de rhabdomyolyse intravasculaires. Cette section décrit les fonctions clés des principaux types de cellules rénales et le rôle spécifique de HO -1 en leur sein.
3.1. Cellules endotheliales
L'endothélium est composé d'une monocouche de cellules endothéliales (CE) qui accomplissent des fonctions critiques dans les vaisseaux sanguins. Ils recouvrent l'intérieur des vaisseaux sanguins et assurent des fonctions de barrière, mais ils servent également d'interface d'échange avec les tissus adjacents, de capteur de stress tissulaire et intravasculaire et de source de médiateurs de défense [42]. En tant que telles, les CE sont la première lignée de cellules à rencontrer des facteurs de stress circulants et l'expression de HO-1 est essentielle à leur survie, les patients déficients en HO-1- et les modèles murins présentant des dommages endothéliaux importants [19,43]. Les effets pro-survie de HO -1 dans EC se produisent dans tous les organes et il existe un grand nombre de travaux concernant son induction par diverses molécules [44,45]. Selon sa localisation (dans différents organes, dans des vaisseaux ou des capillaires), la structure, la spécialisation et les fonctions de l'EC varient. Ainsi, les CE de différents lits vasculaires ont des profils d'expression dynamiques (à la fois dans l'espace et dans le temps) et cela pourrait expliquer leur implication sélective dans différents processus pathologiques [42].
Dans leun rein, trois principaux types d'endothélium peuvent être distingués : glomérulaire, capillaire péritubulaire et endothélium des vaisseaux moyens/grands [46], chacun avec différents niveaux d'expression ou de fonction de HO-1. Le CE glomérulaire est « fenestré » et recouvert d'un glycocalyx [47] responsable de la restriction du passage des macromolécules vers la chambre urinaire [48]. Malgré le glycocalyx, de petites molécules hydrophobes (par exemple, l'hème) peuvent pénétrer dans les membranes cellulaires et activer les voies pro-inflammatoires et prothrombotiques, y compris la signalisation TLR-4, favorisant ainsi l'adhésion des cellules sanguines et la vaso-occlusion (Schaer et al., 2013). Le CE des capillaires péritubulaires est également fenêtré et repose sur un mince stroma. Ils transportent les composants réabsorbés, soutenant la fonction des cellules épithéliales tubulaires [46]. Enfin, les endothéliums des vaisseaux moyens et grands sont contigus, avec des EC interconnectés. La diversité structurelle et fonctionnelle des EC dans le rein en fonction de leur localisation les rend différemment sensibles à des facteurs de stress spécifiques, tels que des molécules filtrées toxiques ou pro-inflammatoires pour les EC glomérulaires, l'hypoxie pour les capillaires péritubulaires ou des changements de contrainte de cisaillement, avec des réponses spécifiques correspondantes. à de telles agressions [46].
Les principaux facteurs affectant l'expression de HO-1 dans l'EC sont l'hypoxie, le stress de cisaillement, la présence d'hème et d'autres facteurs de stress circulants (ammoniac [49], S-adénosyl méthionine [50], etc.), les substances circulantes (statines [51], resvératrol [52], etc.) ou des médicaments. La pression partielle d'oxygène diminue le long du capillaire péritubulaire, notamment dans des conditions de stress avec une consommation excessive d'O2. Fait intéressant, il a été rapporté que l'expression de HO -1 diminuait lors de l'hypoxie alors que l'expression de HO -2 était préservée dans la CE macrovasculaire de la veine ombilicale humaine (HUVEC) [53]. Cependant, l'expression de HO-1 est inductible dans l'EC des capillaires péritubulaires microvasculaires dans différentes conditions pouvant provoquer une hypoxie (hème, angiotensine II, etc.). Le stress de cisaillement physiologique est un déterminant majeur de la survie des CE, comme montré in vivo dans les plaques d'athérosclérose carotidienne humaine [54] et les carotides de lapin à débit sanguin réduit [55] : il induit également l'expression de facteurs anti-inflammatoires (in vitro dans les HUVEC et in vivo dans l'aorte du lapin [56]) et vasodilatatrices (in vitro et in vivo chez la souris [57]). Fait intéressant, l'expression de HO-1 est induite par la contrainte de cisaillement, in vitro dans la CE humaine macrovasculaire (aorte) et microvasculaire (HMEC) [58], et cette expression a été rapportée chez le rat comme étant directement liée au niveau de contrainte de cisaillement. : expression plus élevée à haut débit (dans les artères), mais nécessitant d'autres facteurs pour que HO-1 s'exprime à bas débit (dans les microvaisseaux) [59]. Ce phénomène n'a jusqu'à présent été signalé que dans les vaisseaux intestinaux. Cependant, si ces résultats sont vérifiés dans d'autres organes, cela peut expliquer une diminution de l'induction de HO -1 dans les capillaires tels que l'EC glomérulaire sous stress [27]. L'EC est fortement exposée aux produits cytotoxiques dérivés de l'hémolyse et les réponses endothéliales à ces insultes reflètent l'hétérogénéité de l'EC. Les EC microvasculaires, et en particulier les EC glomérulaires, sont moins susceptibles de réguler à la hausse HO -1 par rapport aux EC macrovasculaires, à la fois in vitro et dans un modèle murin d'hémolyse [27]. Cela les rend particulièrement sensibles aux lésions en raison des différences dans leur régulation du complément C3 et la dégradation de l'hème par rapport aux EC macrovasculaires [27]. On sait peu de choses sur la capacité d'induction HO -1 de l'EC des capillaires péritubulaires.
L'EC macrovasculaire rénale reste peu étudiée en ce qui concerne l'expression et la fonction de HO-1. Le modèle le plus largement utilisé dans l'étude de la CE macrovasculaire est la CE de la veine ombilicale humaine (HUVEC). L'exposition à l'hème dans les HUVEC est responsable de la transduction rapide du signal, de la mobilisation des corps endothéliaux de Weibel Palade et de l'activation de NF-kB, leur conférant ainsi un phénotype pro-inflammatoire et pro-thrombotique [60–62]. Cependant, une exposition plus longue leur permet de développer des mécanismes d'adaptation et de devenir très résistants aux lésions induites par le stress oxydatif et aux produits de peroxydation lipidique. Celles-ci incluent l'induction de ferritine et de HO-1 [63], bien que l'induction de HO-1 dans la CE glomérulaire in vitro et dans les modèles murins d'hémolyse soit beaucoup plus faible [27,64]. L'induction de HO-1 dans les EC macrovasculaires a notamment modulé l'activation du complément [27, 65], l'expression de la thrombomoduline dans les conditions d'hémolyse [27] et dans le cadre des troubles septiques.un reinblessure [66], et l'expression de molécules d'adhésion associées à l'activation des CE [67].
Prises ensemble, ces données indiquent que laun reinl'endothélium est fortement influencé par les toxines et les facteurs de stress en raison de sa fonction de filtration. Ces facteurs de stress semblent déclencher de puissants mécanismes d'adaptation dans les CE macrovasculaires qui leur permettent de résister aux insultes jusqu'à un certain niveau, principalement par la régulation à la hausse de HO-1 et de ses gènes associés. Bien qu'il y ait un manque marqué de données dans la littérature, les études disponibles suggèrent que, contrairement à la CE macrovasculaire, cette régulation positive de HO-1 est moins prononcée dans l'endothélium microvasculaire glomérulaire, ce qui la rend particulièrement sensible au stress environnemental.
3.2. Podocytes
Les podocytes sont des cellules hyperspécialisées qui maintiennent la barrière de filtration glomérulaire grâce à la synthèse des composants de la membrane basale glomérulaire (GBM) et à la formation du diaphragme à fente en attachant leurs processus de pied aux cellules endothéliales glomérulaires [68] (Figure 1). Leur localisation stratégique, permettant leur fonction de filtration, les rend particulièrement sensibles aux stress mécaniques, oxydatifs et immunologiques. Les podocytes ont des réponses adaptatives uniques, y compris la régulation à la hausse de la vimentine et de la desmine [69], ou des protéines antioxydantes telles que la sirtuine1 et la métallothionéine. La sirtuine régule à la hausse Nrf2, améliorant ainsi l'expression de HO-1. [70,71] Fait intéressant, l'expression de la sirtuine-1 (avec Nrf2 et HO-1) a été signalée comme étant augmentée par l'exposition à des produits finaux de glycation avancée [71] et HO{{14} } s'est avéré spécifiquement amélioré dans les podocytes chez les patients diabétiques [72]. Bien que moins étudiée, l'expression de HO-1 a également été décrite dans des conditions hémolytiques [27, 73], l'hème induisant l'expression de HO-1 de manière dépendante de Nrf2- dans les podocytes. Fait intéressant, les souris déficientes en Nrf2- ont développé spontanément une protéinurie avec effacement des processus du pied, diminution de l'expression de la synaptopodine et de la néphrine et apoptose des podocytes [73].
Bien que la littérature sur HO-1 dans les podocytes ne soit pas abondante, les preuves disponibles suggèrent un rôle physiologique protecteur pour l'axe Nrf2/HO-1 en préservant les pédicelles et en inhibant la mort et le détachement des podocytes. Dans des contextes pathologiques, HO-1 est surexprimé en tant que mécanisme de défense, mais pourrait également être un sous-produit de mécanismes de résistance épuisés résultant d'un stress écrasant, auquel cas il est insuffisant pour prévenir les lésions des podocytes.
3.3. Cellules mésangiales
Les cellules mésangiales, avec la matrice mésangiale qu'elles produisent, forment le mésangium, un tissu de soutien pour le glomérule floculus. Parmi les cellules mésangiales, on trouve des cellules immunitaires, de type monocyte/macrophage (5 à 15 %) et des cellules contractiles, qui sont similaires aux cellules musculaires lisses (85 à 95 %) et fournissent un soutien structurel et une contraction [74,75]. L'hème favorise la prolifération des cellules musculaires lisses [76] et son récepteur TLR4 est exprimé sur les cellules mésangiales [77], mais le rôle de HO-1 dans ces cellules est peu étudié. Il a été démontré que l'oxyde nitrique (NO) induisait HO-1 dans les cellules mésangiales [78], les patients déficients en HO-1- ont une légère prolifération mésangiale [17,18,43] et HO{{17} } a été montré pour moduler la prolifération des cellules mésangiales via la régulation positive de p21 [79]. Des travaux supplémentaires sont nécessaires pour déterminer si le vaste ensemble de connaissances accumulées pour les macrophages est applicable aux cellules mésangiales de type macrophage.
3.4. Cellules tubulaires
Si l'expression de HO-1 a été décrite dans les tubules il y a quelque temps, ce n'est que récemment que sa régulation a été décrite comme étant segment-spécifique ; HO-1 joue également des rôles distincts dans différents segments du tubule afin de maintenir les fonctions rénales [80].
3.4.1. Tubule proximal
Les tubules proximaux sont les cellules duun reinqui montrent la capacité la plus élevée pour la surexpression de HO-1. En effet, les cellules épithéliales tubulaires proximales se sont révélées particulièrement sensibles au stress oxydatif in vitro [81]. Ils dépendent fortement de l'HO-1 pour se protéger et s'adapter aux facteurs de stress, comme en témoigne le fait que la lésion tubulaire est la caractéristique pathologique cardinale de la déficience humaine en HO-1 [82]. La fonction principale du tube rénal proximal est l'absorption d'eau, d'ions, d'acides aminés et de protéines filtrées. En l'absence de lésions glomérulaires, les protéines filtrées ont pour la plupart une taille inférieure à 68 kDa. L'internalisation des protéines, y compris celles associées à l'hème telles que la myoglobine ou l'hémoglobine, mais aussi l'hémopexine, se produit via les récepteurs de la mégaline et de la tubuline [83]. Cette fonction de réabsorption nécessite une grande quantité d'énergie (ATP) apportée par la bêta-oxydation mitochondriale [84]. Cependant, un épuisement sévère de l'ATP entraîne des lésions mitochondriales, entraînant un épuisement supplémentaire des réserves d'énergie et la formation d'espèces réactives de l'oxygène [85]. Cette forte demande métabolique produit un état d'hypoxie relative dans la moelle rénale, et les tubules proximaux sont particulièrement sensibles à l'ischémie/reperfusion et à l'excès d'hème [86,87]. La sensibilité à l'hème s'explique également par l'expression constitutive de TLR4 (un récepteur de l'hème) par les tubules proximaux [61], et l'expression de TLR4 est augmentée dans les lésions d'ischémie-reperfusion rénale et les lésions septiques [77].
Alors que HO-1 n'est exprimé que faiblement dans leun reindans des conditions normales, elle est fortement inductible dans les tubules proximaux sous différentes formes de stress [88], dont la protéinurie [80]. L'interaction entre l'absorption de protéines contenant de l'hème, la pression osmotique entraînant l'influx d'hème, l'expression de TLR4 et l'augmentation de la synthèse de l'hème dans les tubules proximaux peuvent expliquer ensemble cette forte régulation à la hausse spécifique de HO-1. Il a été suggéré que l'expression de HO -1 dans les cellules épithéliales tubulaires dépend davantage de l'exposition basolatérale à l'hème (des capillaires péritubulaires dans des conditions hémolytiques) que de la teneur en hème intraluminale. Cependant, dans des conditions d'hypoxie et de polarité altérée de l'EC rénale, il a été rapporté que la régulation positive de HO -1 dépendait davantage de l'exposition apicale à l'hème [89]. Dans les cellules épithéliales tubulaires, la régulation positive de HO-1 par l'hème dépend de la stabilisation de Nrf2 [90]. HO-1 a un double rôle dans l'EC tubulaire, étant à la fois un anti-oxydant et un régulateur de la mort cellulaire. En effet, HO-1 est responsable de la régulation à la hausse de p21, un inhibiteur de la kinase cycline-dépendante responsable de l'arrêt de la progression du cycle cellulaire, qui réduit l'apoptose dans la CE tubulaire [91,92]. De plus, l'expression de HO-1 diminue la ferroptose dans les cellules tubulaires proximales, une mort cellulaire régulée non apoptotique associée à l'accumulation d'espèces réactives de l'oxygène (ROS) dérivées de la peroxydation lipidique [93]. Enfin, il a été démontré que HO-1 inhibe l'autophagie dans les cellules tubulaires proximales [94].
Au total, les cellules des tubules proximaux sont massivement exposées aux inducteurs de HO-1 dans des contextes pathologiques (filtration de l'hémoglobine, de la myoglobine, des complexes hémopexine-hème ; ischémie, filtration de produits toxiques ou de médicaments, etc.) et dépendent de l'HO{{2 }} pour leur protection, mais HO-1 est également un marqueur de stress tubulaire et de blessure lorsque leur capacité d'adaptation est dépassée.
3.4.2. Tubule distal
Les EC tubulaires distaux le long de la moelle, notamment dans la branche épaisse et ascendante de l'anse de Henle (mTAL) et le tubule contourné distal (DCT), sont impliqués dans la concentration et la dilution de l'urine et le maintien des niveaux homéostatiques de sel et de soluté par exprimant différents canaux spécifiques à leur localisation et à leur sous-type cellulaire. Lors de la réabsorption d'eau, la concentration de toxines (notamment l'hème) devient beaucoup plus élevée dans les segments distaux du néphron. En raison de la faible pression partielle d'oxygène le long des capillaires péritubulaires, ces EC tubulaires distaux sont particulièrement vulnérables à l'hypoxie et dépendent davantage de la production anaérobie et glycolytique d'ATP que les cellules proximales. Les tubules distaux ont une plus grande capacité à survivre et à s'adapter au stress hypoxique [95], étant moins sensibles à la mort cellulaire, en particulier après une lésion ischémique [96].
Les tubules distaux, comme les tubules proximaux, n'expriment que faiblement HO-1 au niveau basal ; lors de la stimulation, cependant, son induction par l'hème a été remise en question [88]. (Fait intéressant, HO-2 peut être amélioré par l'hème dans les tubules distaux [97].) Cependant, le rôle de HO- 1 dans les tubules distaux reste à élucider car son expression a également été associée à une amélioration fonction rénale après ischémie/reperfusion dans la transplantation d'un donneur cadavérique [98], ainsi que dans l'IRC [99]. Cela peut être lié à la fonction de régénération des cellules épithéliales tubulaires distales, mais d'autres études sont nécessaires pour mieux décrire la relation entre HO-1 et les fonctions des cellules épithéliales tubulaires distales.
Pour conclure, alors que les données concernant les tubules distaux font défaut, certaines preuves suggèrent qu'une expression accrue de HO -1 pourrait conférer une protection à l'EC des tubules distaux.