

PGC-1 inhibe l'inflammasome NLRP3 en préservant la viabilité mitochondriale pour protéger la fibrose rénale
Dec 15, 2023
INTRODUCTION
Maladie rénale chronique(IRC) est un problème de santé mondial et sa prévalence a augmenté dans le monde entier [1–3].Patients atteints d'IRCont un risque accru de progression vers une insuffisance rénale terminale et de mortalité [4, 5]. Il est donc important de trouver des cibles thérapeutiques efficaces pour prévenirprogression de la maladie rénale chronique. Tubulo-interstitiel rénalinflammation et fibrosesont des caractéristiques pathologiques clés dans leprogression de la maladie rénale chronique[6–8]. Cellules épithéliales des tubes rénaux(RTEC) sont essentiels au maintien de l’homéostasie hydrique et électrolytique et représentent 90 % de la masse rénale. Les RTEC sécurisent des mitochondries abondantes et ont des niveaux élevés de récepteur activé par les proliférateurs peroxysomaux (PPAR) et de coactivateur de proliférateurs peroxysomaux -1 (PGC-1) pour répondre à leurs demandes énergétiques métaboliques et fonctionnelles [9]. De plus en plus de preuves suggèrent que le dysfonctionnement mitochondrial, caractérisé par une diminution de leur nombre ainsi que par la dépolarisation, le gonflement et la perturbation des crêtes, contribue grandement à la fibrose rénale (10, 11). Les mitochondries endommagées ne produisent pas efficacement de l'adénosine triphosphate (ATP) et en libèrent des quantités excessives.les espèces réactives de l'oxygène(ROS) et l'ADN mitochondrial (ADNmt), qui déclenchent par conséquent des réponses inflammatoires en aval et conduisent à la mort cellulaire et à des lésions tubulaires.
La famille des récepteurs de type NOD contenant le domaine pyrine 3 (NLRP3) est impliquée dans diverses réponses immunitaires innées de l'hôte aux stimuli microbiens et non microbiens (12, 13). Plusieurs agents pathogènes et signaux de danger endogènes libérés par des cellules endommagées ou mourantes activent le NLRP3 et conduisent à la formation d'un complexe protéique appelé « inflammasome » [14]. L'inflammasome NLRP3 induit ensuite l'auto-traitement et l'activation de la caspase-1, ce qui entraîne le clivage des pro-cytokines pour faire mûrir l'IL-1 et l'IL-18. Récemment, l'inflammasome NLRP3 a été impliqué dans la pathogenèse des lésions rénales et de la fibrose (15-17). Dans divers modèles animaux de maladie rénale, la voie inflammatoire NLRP3 est activée et ses produits finaux, IL-1 et IL-18, peuvent provoquer des lésions des tubules rénaux (16-19). Il est intéressant de noter que les cellules rénales intrinsèques telles que les RTEC et les podocytes expriment NLRP3, suggérant le rôle potentiel de la signalisation de l'inflammasome NLRP3 sur les lésions cellulaires (20, 21). De plus, des études récentes ont démontré l'interaction potentielle entre le dysfonctionnement mitochondrial et l'activation de l'inflammasome NLRP3 dans des modèles de lésions des tubules rénaux (22-24). Cependant, on ne sait pas si PGC-1 , un régulateur clé de la biogenèse mitochondriale, peut réguler la voie NLRP3 en modulant la dynamique mitochondriale.
Ainsi, nous avons étudié le rôle de PGC-1 dans la régulation de l'activation de l'inflammasome NLRP3 dans les RTEC. En particulier, nous avons examiné si une altération de la viabilité et de la dynamique des mitochondries induite par l'activation ou la suppression de PGC-1 pouvait réguler la voie de l'inflammasome NLRP3, et doncaffecter les lésions rénales.


Service de soutien de Wecistanche - Le plus grand exportateur de cistanche en Chine :
E-mail :wallence.suen@wecistanche.com
Whatsapp/Tél :+86 15292862950
Achetez pour plus de détails sur les spécifications :
https://www.xjcistanche.com/cistanche-shop
OBTENEZ UN EXTRAIT NATUREL DE CISTANCHE BIOLOGIQUE AVEC 25% D'ÉCHINACOSIDE ET 9% D'ACTÉOSIDE POUR L'INFECTION DES REINS
MÉTHODES
Cultures cellulaires, traitement de l'activateur TGF- 1, PGC-1 et transfection en RTEC primaires. Des RTEC ont été isolés de souris C57BL/6. Une méthode concise est décrite dans Méthodes supplémentaires. Les RTEC sous-confluents ont été restreints au FBS pendant 24 h, puis le milieu a été remplacé par du milieu FBS DMEM à 1 % pour le groupe témoin et le même milieu avec du TGF- 1 (5 ng/ml) (R&D Systems, Minneapolis, MN , USA) pour le groupe TGF- 1. Les RTEC ont été récoltés pour des analyses d'ARN et de protéines 48 h après les changements de milieu. L'activateur PGC-1, la metformine (1 mM) a été traitée pour les groupes témoin et TGF- 1. Les doses de médicaments ont été déterminées sur la base de nos tests antérieurs. De plus, les cellules ont également été transfectées avec le plasmide Ppargc1a (1 µg) (Addgene, Cambridge, MA, USA) et le petit ARN interférent Ppargc1a (siARN), en utilisant les réactifs Lipofectamine 2000 et Plus (Invitrogen, Carlsbad, CA, USA). Ensuite, 6 heures après la transfection, les milieux ont été remplacés par des milieux sans sérum et les cellules ont été incubées pendant 48 heures supplémentaires. Pour inhiber l'expression de Drp1, nous inhibons le gène Drp1 avec un lentivirus contenant Drp1 ciblant l'ARN en épingle à cheveux court (shRNA) pour infecter les RTEC (aimablement offert par le Dr Yu J, Yonsei University College of Medicine) (25). Pour explorer plus en détail la relation entre l'inflammasome NLRP3 et les lésions mitochondriales, nous avons également obtenu des RTEC de souris knock-out Nlrp3 (aimablement offertes par le Dr Yu J, Collège de médecine de l'Université Yonsei).
Etude et traitement des animaux
Des souris mâles C57BL/6 (âgées de 6 semaines, poids initial de 20 g) ont été achetées au Jackson Laboratory (Bar Harbor, ME, USA). Les animaux ont été maintenus dans une pièce à température contrôlée (22 degrés) selon un cycle lumière/obscurité de 12 heures. Tous les animaux ont été répartis au hasard. Une semaine après leur arrivée, les animaux ont été divisés en deux groupes et nourris soit avec un régime normal (ND; n=10), soit avec un régime à 0, 2% d'adénine (Ade; n=10) pendant 4 semaines maximum. Les groupes ND et Ade ont également été traités quotidiennement par une injection intrapéritonéale de metformine (250 mg/kg), une semaine avant le début du régime. Après 4 semaines de ND ou d'Ade, les animaux ont été sacrifiés et les reins ont été extraits sous anesthésie au Zoletil (10 mg/kg) (Virbac, Carros, France). Une méthode concise pour la préparation de souris à obstruction unilatérale de l’uretère (UUO) est décrite dans Méthodes supplémentaires. Les échantillons de reins ont ensuite été immédiatement congelés dans de l'azote liquide et conservés à -80 degrés jusqu'à leur utilisation.

Réaction en chaîne par polymérase quantitative en temps réel, analyses Western Blot
Les niveaux de transcription de gènes, notamment Ppargc1a, la voie inflammatoire NLRP3, la dynamique mitochondriale, la protéine induite par le facteur de nécrose tumorale 3 (TNFAIP3), le marqueur de stress oxydatif et les marqueurs profibrotiques ont été comparés par réaction en chaîne par polymérase quantitative (qPCR). Les séquences d'amorces utilisées dans cette étude ont été décrites dans le tableau supplémentaire 1. Des méthodes plus détaillées sont décrites dans Méthodes supplémentaires. Les niveaux d'expression protéique de la PGC-1, de la voie de l'inflammasome NLRP3, du TNFAIP3, du marqueur de stress oxydatif et des marqueurs profibrotiques ont été examinés avec des analyses par Western blot. Les méthodes détaillées et les informations sur les anticorps sont décrites séparément dans Méthodes supplémentaires.
Dosage de l'assemblage de l'inflammasome NLRP3
Pour déterminer l'oligomérisation de la protéine de type speck associée à l'apoptose contenant un domaine de recrutement de caspase (ASC), un test de réticulation médié par le disuccinimidyle (DSS) (Gibco, Thermo Fisher Scientific, Waltham, MA, USA) a été réalisé comme décrit. auparavant [26]. En bref, les RTECS et les cellules provenant d'échantillons de tissus rénaux ont été agglomérées par centrifugation et lysées dans 0,5 ml de tampon de lyse contenant 20 mM d'Hepes KOH, pH 7,5, 150 mM de KCl, 1 % de NP40, Cocktail de PMSF et d'inhibiteurs de protéase 0,1 mM sur glace. Les lysats cellulaires ont été centrifugés à 6 000 tr/min à 4 degrés pendant 10 min. Les culots ont été lavés deux fois avec du PBS puis remis en suspension dans 500 µl de PBS. Les culots remis en suspension ont été réticulés avec du DSS frais (2 mM) pendant 30 min, puis agglomérés par centrifugation à 6 000 tr/min pendant 10 min. Les culots réticulés ont été remis en suspension dans 30 µl de tampon d'échantillon SDS et fractionnés sur un gel de polyacrylamide SDS à 12%, suivi d'un immunoblot avec un anticorps ASC (Cell Signaling Technology, MA, USA).
Mesure des niveaux de stress oxydatif
Les niveaux de stress oxydatif (malondialdéhyde [MDA]) ont été mesurés dans les RTEC et les tissus rénaux à l'aide d'un kit de test MDA (Abcam, Cambridge, MA, USA). 10 mg de RTEC ont été homogénéisés sur de la glace dans 300 µl de tampon de lyse MDA (Abcam, Cambridge, MA, USA), puis centrifugés (13, 000 × g, 10 min) pour éliminer les matières insolubles. 10 ml de plasma ont été mélangés avec 500 ul de H2SO4 42 mM et 125 ul de solution d'acide phosphotungstique à température ambiante pendant 5 min. Après centrifugation (13,000 × g, 3 min), le culot a été remis en suspension sur de la glace avec 100 ul de H2O bidistillée. Ensuite, 200 ul de solution et 600 ul de solution d'acide 2-thiobarbiturique ont été incubés à 95 degrés pendant 60 min avant de refroidir à température ambiante dans le bain de glace pendant 10 min. L'intensité de l'absorbance à 532 nm était proportionnelle au niveau de MDA.
Isolement des mitochondries
Les RTEC ont été fractionnés en cytosol et en mitochondries à l'aide d'un kit d'isolement de mitochondries (BioVision, Inc. CA, USA) conformément au protocole du fabricant. En bref, les cellules ont été collectées et lavées avec 10 ml de PBS glacé. Les cellules ont été centrifugées à 600 × g pendant 5 min à 4 degrés et remises en suspension dans 1,0 ml de tampon d'extraction Cytosol 1 ×. L'homogénéisation a été réalisée sur de la glace et centrifugée à 1 200 x g pendant 10 min à 4 degrés pour éliminer les noyaux et les cellules intactes. Le surnageant collecté a été centrifugé à 10,000 × g pendant 30 min à 4 degrés. Les culots résultants ont été remis en suspension dans 1,0 ml de tampon d'extraction de cytosol 1 × et centrifugés à 10, 000 × g pendant 30 min à 4 degrés pour obtenir des mitochondries. Les mitochondries obtenues ont été lysées dans 30 ul de tampon de lyse mitochondriale et ajoutées à 100 ul de mélange d'enzymes (inclus dans le kit d'isolement) avec 100 ul d'éthanol absolu. Après centrifugation, le culot résultant était de l’ADNmt. L'ADNmt cytosolique a été obtenu à partir du surnageant après précipitation avec de l'éthanol. La concentration d'ADNmt a été déterminée par test qPCR.
Évaluation de la dynamique et de la fonction mitochondriales
Pour la visualisation de la dynamique mitochondriale, la coloration immunofluorescente des mitochondries, MitoTracker Deep Red (Gibco, Thermo Fisher Scientific, Waltham, MA, USA) a été utilisée. Les RTEC ont été fixés dans 4 % de paraformaldéhyde et bloqués dans du DPBS contenant 5 % de sérum de lapin normal et 0,1 % de Tween- 20. Les cellules ont ensuite été colorées avec du NLRP3 anti-souris, MitoTracker, suivi d'anticorps anti-lapin de chèvre conjugués AlexaFluor 594- (Jackson ImmunoResearch, West Grove, PA), et enfin, les lames ont été montées avec du DAPI et imagées. Nous avons ensuite examiné la structure mitochondriale par microscopie électronique à transmission standard. Les RTEC primaires ont été fixés avec un mélange de 2% de paraformaldéhyde et de 2,5% de glutaraldéhyde pendant une nuit, lavés, déshydratés et incorporés dans une résine selon les procédures standard. Les mitochondries ont été examinées au microscope JEOL 1011 (JEOL, Tokyo, Japon). Pour évaluer le taux de respiration mitochondriale, un analyseur de flux extracellulaire Seahorse Bioscience ×24 a été utilisé (Seahorse Bioscience, Billerica, MA, USA). Pour mesurer la production de ROS mitochondriales, les cellules ont été remises en suspension dans une solution saline équilibrée de Hank après des traitements appropriés et colorées avec du MitoSOX (Gibco, Thermo Fisher Scientific, Waltham, MA, USA) à 37 degrés pendant 20 min. La fluorescence des cellules a été mesurée par un cytomètre en flux (FACSVerse, BD Biosciences, San Jose, CA, USA). Pour analyser le potentiel de la membrane mitochondriale, un kit d'analyse du potentiel de la membrane mitochondriale de l'ester éthylique de tétraméthylrhodamine (TMRE) (Abcam, Cambridge, MA, USA) a été utilisé.

RÉSULTATS
Les altérations de la PGC-1, de la dynamique mitochondriale et de la voie de l'inflammasome NLRP3 lors d'une lésion rénale. Tout d'abord, nous avons examiné l'expression de la PGC-1, de la dynamique mitochondriale et de la voie NLRP3 dans les RTEC traités avec TGF- 1 . Dans ces cellules, le traitement par TGF- 1 a diminué les niveaux de transcrit et de protéine de Ppargc1a (Fig. 1A, B et Fig. 1A supplémentaire). En conséquence, les niveaux d'expression de l'ARNm de la mitofusine (Mfn), un gène lié à la fusion mitochondriale, et du facteur de transcription mitochondrial A (Tfam), qui représente la masse mitochondriale, ont été significativement diminués, tandis que ceux de la protéine 1 liée à la dynamine (Drp1), un gène mitochondrial. Le gène lié à la fission a été augmenté par rapport au contrôle (Fig. 1C). De plus, le traitement par TGF - 1 a activé la signalisation de l'inflammasome NLRP3, comme en témoigne l'augmentation des niveaux d'expression des gènes et des protéines liés à la voie de l'inflammasome NLRP3 (Fig. 1D, E et Fig. 1B supplémentaire). Les concentrations d'IL-1 et d'IL-18, les produits finaux de la voie NLRP3, dans les lysats cellulaires traités au TGF- 1-, mesurées par ELISA, ont été augmentées (Fig. 1F). De plus, les niveaux d'expression de marqueurs fibrotiques, notamment la fibronectine et le collagène 1, ainsi que l'indice de mort cellulaire apoptotique du rapport Bax/bcl-2 et de la caspase clivée-3 ont également été augmentés (Fig. 1G, H et Fig. 1C supplémentaire). ). Ces résultats étaient similaires dans le modèle de lésion rénale induite par l'adénine (Fig. 2A – H et Fig. Supplémentaire 1D – F). Ainsi, lors d'une lésion rénale, il existe des altérations significatives de l'expression de la PGC-1 et de la dynamique mitochondriale, ainsi que l'activation de la voie de l'inflammasome NLRP3.

Fig. 1 Modifications de la PGC-1, de la dynamique mitochondriale et de la voie de l'inflammasome NLRP3 dans les RTEC traités au TGF- 1-. Les niveaux d'expression de l'ARNm et de la protéine B de la PGC-1 ont été diminués dans les RTEC traités au TGF- 1-. L'expression de l'ARNm C de gènes liés à la dynamique mitochondriale, notamment Mfn, Tfam et Drp1, a été modifiée dans les RTEC traités au TGF - 1-. Les niveaux d'expression de l'ARNm D et de la protéine E de la voie de l'inflammasome NLRP3 ont été augmentés dans les RTEC traités au TGF{{10}}. F Les concentrations d'IL-1 et d'IL-18 évaluées par ELISA ont été augmentées dans les RTEC traités au TGF- 1-. Les niveaux d'expression de l'ARNm G et de la protéine H des marqueurs fibrotiques, notamment la fibronectine et le collagène 1, et les marqueurs de mort cellulaire apoptotique de Bax/bcl-2 et de la caspase clivée-3 ont été augmentés dans les RTEC traités au TGF- 1-. Remarque : *P < 0,05 par rapport au contrôle. PGC-1 proliférateur-coactivateur peroxysomal-1 ; Famille de récepteurs de type NOD NLRP3, contenant 3 du domaine pyrine ; ASC, protéine de type tache associée à l'apoptose contenant un domaine de recrutement de caspase ; Cellule épithéliale tubulaire rénale RTEC ; mitofusine Mfn ; Facteur de transcription mitochondrial A Tfam ; Protéine 1 liée à la dynamine Drp1 ; Test immuno-enzymatique ELISA.
PGC-1 restaure la dynamique et la morphologie mitochondriales altérées lors d'une lésion rénale
Nous avons ensuite examiné si la PGC-1, un régulateur clé de la biogenèse mitochondriale, pouvait atténuer la dynamique mitochondriale lors d'une lésion rénale. Pour moduler l'expression de Ppargc1, nous avons également utilisé le plasmide Ppargc1a, un siARN contre Ppargc1 (siPGC-1 ) et la metformine, un activateur indirect de PGC-1 . Comme prévu, les gènes liés à la dynamique mitochondriale altérée ont été restaurés par surexpression de Ppargc1 . En revanche, l'inactivation de Ppargc1a avec siPGC-1 a diminué l'expression de Mfn et Tfam, mais a augmenté l'expression de Drp1 (Fig. 3A – C et Fig. 2A, B supplémentaires). Ces résultats ont été corroborés par des expériences supplémentaires avec la metformine (Fig. 3D – F et Fig. 2C, D supplémentaires). De telles améliorations ont conduit à la récupération de la fonction mitochondriale. La restauration de PGC-1 avec le plasmide Ppargc1a et la metformine a significativement amélioré la diminution du potentiel de membrane mitochondriale et la diminution du taux de consommation d'oxygène dans les RTEC traités avec TGF- 1 (Fig. 3A – D supplémentaire). Conformément aux modifications de la PGC-1, l'expression de la protéine kinase activée par la phospho-AMP (p-AMPK) a diminué dans les cellules traitées au TGF- -, alors que le traitement à la metformine a récupéré ces expressions (Fig. 3F et Fig. 2E supplémentaire). Cependant, la metformine n'a pas augmenté les niveaux d'expression de l'ARNm et des protéines de PGC-1 dans les RTEC avec l'inactivation de Ppargc1a. Ces résultats suggèrent que l'AMPK médie l'effet de la metformine et que la PGC -1 est un effecteur en aval de l'AMPK (Fig. 2F, G, J supplémentaires). Les effets bénéfiques de la metformine sur la dynamique mitochondriale ont également été abrogés par la désactivation de Ppargc1a (Fig. 2H – J supplémentaire). In vivo, le traitement à la metformine a également restauré le niveau de transcription de Ppargc1 et inversé l'expression altérée des gènes liés à la dynamique mitochondriale chez les souris nourries à l'adénine et UUO (Fig. 3G – I et Fig. Supplémentaires 2K, L, 4A – E). L'activité AMPK de la metformine a également été confirmée in vitro dans le modèle alimenté par l'adénine (Fig. 3I et Fig. 2M supplémentaire). L'examen par microscopie électronique a également confirmé la perte de l'intégrité des mitochondries dans les RTEC de souris nourries à l'adénine et UUO. Cependant, ceux-ci ont été significativement améliorés par la metformine (Fig. 3J et Fig. 4F supplémentaire). Ces résultats suggèrent que la PGC -1 rétablit la dynamique, la morphologie et les fonctions altérées des mitochondries lors d'une lésion rénale.
Les lésions mitochondriales peuvent entraîner la mort des cellules rénales et la fibrose. Nous avons observé des niveaux d'expression élevés de marqueurs fibrotiques, notamment la fibronectine et le collagène 1, ainsi qu'un indice de mort cellulaire apoptotique du rapport Bax/bcl-2 et de la caspase clivée-3 dans les RTEC après un traitement au TGF- 1. Ces expressions accrues de marqueurs de mort cellulaire ont été atténuées par la surexpression de PGC -1 et de metformine, alors qu'elles ont été exacerbées par siPGC -1 (Fig. 4A – D et Fig. 5A, B supplémentaires). Conformément à ces résultats, les niveaux d'expression des marqueurs fibrotiques et l'indice de mort cellulaire apoptotique ont été significativement augmentés chez les souris nourries à l'adénine et UUO. En revanche, la metformine a inversé toutes ces expressions (Fig. 4E, F et Fig. Supplémentaires 5C, 6A, B). La coloration au trichrome de Masson a également confirmé l'amélioration de la fibrose grâce à la metformine (Fig. 4G). Notamment, les marqueurs de mort cellulaire augmentés et la signalisation NLRP3 dans les RTEC traités avec TGF- ont été inversés par Z-Asp-2,6- dichlorobenzoyloxyméthylcétone (Enzo Life Science, Farmingdale, NY, USA), une pan-caspase inhibiteur, suggérant que les lésions induites par le TGF - - sont susceptibles d'être médiées par des lésions mitochondriales et une apoptose précoce (Fig. Supplémentaire 7A – D). Ensemble, ces résultats suggèrent que l'activation de la PGC-1 atténue les dommages mitochondriaux et diminue la mort cellulaire et la fibrose rénale.

PGC-1 module
Voie de signalisation de l'inflammation NLRP3 Nous avons ensuite exploré plus en détail la relation entre la voie PGC-1 et l'inflammation NLRP3 dans la médiation des lésions rénales. Lorsque la surexpression de PGC-1 a été induite à l'aide d'une transfection plasmidique Ppargc1a, les niveaux d'expression de NLRP3, ASC, IL-1 et IL-18 ont été diminués dans les RTEC traités au TGF- 1- ( Fig. 5A, B et Fig. 8A supplémentaire). Les concentrations d'IL-1 et d'IL-18 dans les lysats cellulaires traités au TGF- 1-, mesurées par ELISA, ont également diminué après la transfection du plasmide Ppargc1a (Fig. 5C). Le traitement par la metformine a donné un résultat similaire (Fig. 5D, E et Fig. 8B supplémentaire). Cependant, l'inactivation de Ppargc1a a entraîné des niveaux d'expression élevés de gènes et de protéines liés à la voie de l'inflammasome NLRP3 (Fig. 5A, B et Fig. 8A supplémentaire). De plus, l'activation de la voie de signalisation de l'inflammasome NLRP3 chez les souris nourries à l'adénine et UUO a été diminuée de manière concomitante par la metformine (Fig. 5F, G et Supplémentaires, Fig. 6C, D, 8C). Les concentrations d'IL-1 et d'IL-18 dans les RTEC et les lysats de tissus rénaux ont été significativement diminuées par le traitement à la metformine mesurée par ELISA (Fig. 5H).
Compte tenu de la capacité de PGC-1 à réguler la dynamique mitochondriale, nous avons ensuite testé le rôle de Drp1 dans l'activation de l'inflammasome NLRP3. La signalisation de l'inflammasome NLRP3 a été considérablement réduite par l'inactivation de Drp1. Cependant, dans les RTEC avec inactivation de Ppargc1a et Drp1, les niveaux d'expression des composants de l'inflammasome NLRP3 n'étaient pas diminués par rapport à ceux des cellules traitées au TGF - 1-. Dans les RTEC avec surexpression de Ppargc1a et inactivation de Drp1, la signalisation de l'inflammasome NLRP3 était moins activée (Fig. Supplémentaire 9A, B). Ces résultats suggèrent que Drp1 peut en partie médier l'activation de l'inflammasome NLRP3, mais que d'autres actions de PGC-1 sont impliquées dans la régulation de la voie de signalisation NLRP3.
Nous avons en outre examiné s'il existe un signal de rétroaction provenant de l'inflammasome NLRP3. À cette fin, nous avons obtenu des RTEC par culture primaire de souris knock-out Nlrp3. Dans ces cellules traitées avec TGF- 1, il y avait moins d'activation de la signalisation NLRP3 que dans les cellules homologues, ce qui a conduit à des améliorations de la dynamique mitochondriale (Fig. 10A – E supplémentaire). En conséquence, il y a eu des améliorations concomitantes des modifications fibrotiques et de la mort cellulaire en l'absence de Nlrp3 (Fig. 10F, G supplémentaires). Ces résultats suggèrent une possible relation bidirectionnelle entre les dommages mitochondriaux et la signalisation NLRP3.
L'oligomérisation de NLRP3 avec la protéine adaptatrice, ASC, est une étape clé de la formation du complexe inflammatoire. Ainsi, nous avons examiné si l'assemblage de l'inflammasome NLRP3 est affecté par PGC- 1 . Dans les RTEC traités au TGF- 1-, une liaison de l'ASC à NLRP3 a été observée. Cette oligomérisation était significativement diminuée par la surexpression de PGC-1 ou de metformine, alors que la liaison était restaurée par siPGC-1 (Fig. 6A – C). Chez les souris nourries à l'adénine, l'oligomérisation et l'activation de NLRP3 ont été confirmées par la liaison de l'ASC à NLRP3 et cela a été aboli par la metformine (Fig. 6D, E).
Enfin, nous avons examiné plus en détail le contenu mitochondrial et les modifications concomitantes de l'expression de NLRP3. L'examen par microscopie confocale a révélé qu'il y avait un changement réciproque dans l'intensité de MitoTracker Red et l'expression de NLRP3 dans les RTEC avec ou sans PGC-1. Le TGF- 1 a diminué l'intensité de la coloration de MitoTracker et celles-ci ont été restaurées par la surexpression de PGC-1 et la metformine. À l'inverse, l'expression accrue de NLRP3 dans les RTEC traités au TGF- 1- a été réduite par la surexpression de PGC-1 et la metformine. Cependant, siPGC-1 a inversé ces résultats (Fig. 7). Dans l'ensemble, ces résultats indiquent que l'assemblage du complexe inflammatoire NLRP3 a été induit lors d'une lésion rénale et que l'activation de cette voie a été atténuée par la PGC-1 .
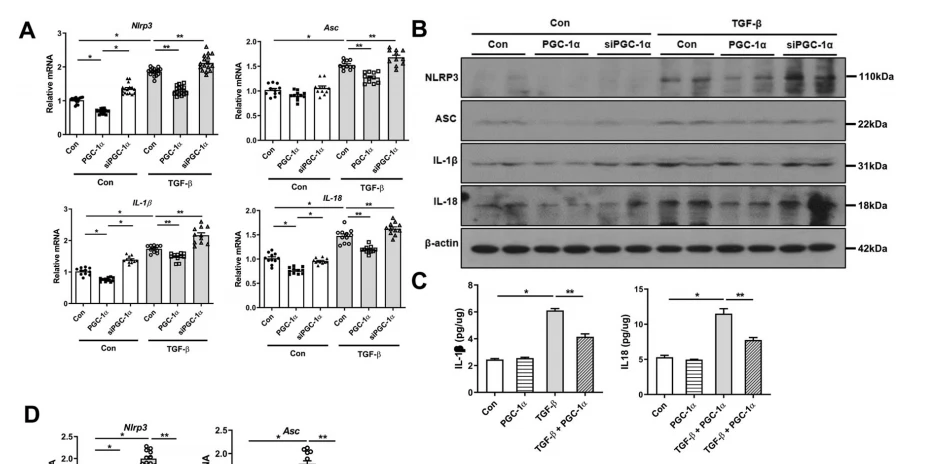
Fig. 5 PGC-1 module la voie de signalisation de l'inflammasome NLRP3. Les niveaux d'expression de l'ARNm et de la protéine B de la voie de l'inflammasome NLRP3 ont été réduits dans les RTEC traités au TGF- 1- avec transfection du plasmide Ppargc1a, alors qu'ils ont augmenté par siPGC-1. C Les concentrations d'IL- 1 et d'IL-18 évaluées par ELISA ont été réduites dans les RTEC traités au TGF- 1- avec surexpression de Ppargc1a. Les niveaux d'expression de l'ARNm D et de la protéine E de la voie de l'inflammasome NLRP3 ont été atténués dans les RTEC traités au TGF- 1- avec de la metformine. Les niveaux d'expression de l'ARNm F et de la protéine G de la voie de l'inflammasome NLRP3 et les concentrations de H d'IL-1 et d'IL-18 évaluées par ELISA ont été atténuées chez des souris nourries à l'adénine avec de la metformine. Remarque : *P < 0.05 contre contrôle ; **P < 0,05 par rapport aux RTEC traités au TGF- 1- ou aux souris nourries à l'adénine. PGC-1 proliférateur-coactivateur peroxysomal-1 ; Famille de récepteurs de type NOD NLRP3, contenant 3 du domaine pyrine ; Protéine de type tache associée à l'apoptose ASC contenant un domaine de recrutement de caspase ; Cellule épithéliale tubulaire rénale RTEC ; Test immuno-enzymatique ELISA ; Adé adénine; Avec la metformine.

La figure 6 PGC-1 module l'oligomérisation de l'inflammasome NLRP3 lors d'une lésion rénale. Des structures oligomères A – C ASC analysées par réticulation médiée par DSS ont été observées dans les RTEC traités au TGF - 1-, qui ont été atténuées par la surexpression de Ppargc1a et de metformine, alors qu'elles ont été aggravées par siPGC -1. Des structures oligomères D, E ASC ont été observées chez des souris nourries à l'adénine, qui ont été atténuées par la metformine. Remarque : *P < 0.05 contre contrôle ; **P < 0,05 par rapport aux RTEC traités au TGF- 1- ou aux souris nourries à l'adénine. PGC-1 proliférateur-coactivateur peroxysomal-1 ; Famille de récepteurs de type NOD NLRP3, contenant 3 du domaine pyrine ; Protéine de type tache associée à l'apoptose ASC contenant un domaine de recrutement de caspase ; subérate de disuccinimidyle DSS ; Cellule épithéliale tubulaire rénale RTEC ; Adé adénine; Avec la metformine.
PGC-1 orchestre la libération d'ADNmt, le stress oxydatif et TNFAIP3 pour réguler l'inflammasome NLRP3
Pour clarifier davantage le lien mécanistique entre la PGC-1 et la voie de l'inflammasome NLRP3 en cas de lésion rénale, nous avons d'abord examiné les modifications de l'ADNmt lors d'une lésion cellulaire, connue comme un déclencheur de l'activation de l'inflammasome NLRP3. Le nombre de copies d'ADNmt a diminué dans la fraction mitochondriale et a augmenté dans la fraction cytosolique après le traitement au TGF- 1, ce qui suggère que l'ADNmt a été libéré des mitochondries dans le cytosol. Notamment, ces changements ont été restaurés après la surexpression de Ppargc1a (Fig. 8A).
Ensuite, nous avons examiné le stress oxydatif, un régulateur positif de l’inflammasome NLRP3. Dans les RTEC traités au TGF- 1-, le stress oxydatif était particulièrement prononcé par rapport aux témoins, mis en évidence par une intensité de coloration accrue au MitoSOX et une augmentation des niveaux de MDA. Le traitement avec le plasmide Ppargc1a et la metformine a atténué cette surproduction de ROS mitochondriales. À l'inverse, l'inactivation de Ppargc1a a encore augmenté les niveaux de stress oxydatif dans les RTEC traités au TGF - 1- (Fig. 8B – D). Semblable aux résultats d’une étude in vitro, les niveaux de MDA étaient significativement augmentés chez les souris nourries à l’adénine et UUO. Le stress oxydatif accru a été réduit par la metformine (Fig. 8E et Fig. 6E supplémentaire).
Enfin, nous avons examiné plus en détail TNFAIP3, qui est régulé par PGC-1 et est également connu comme un régulateur négatif de l'inflammasome NLRP3. TGF- 1 a réduit les niveaux de transcription de Tnfaip3 et cette diminution de l'expression de Tnfaip3 a été restaurée par la restauration de PGC-1 . En revanche, l'inactivation de Ppargc1a a entraîné une diminution supplémentaire de l'expression de Tnfaip3 (Fig. 8F, G et Fig. Supplémentaire, 8D, E). De plus, il y avait une diminution de l'expression de TNFAIP3 chez les souris nourries à l'adénine et UUO et la metformine a restauré cette expression (Fig. 8H et Fig. Supplémentaire, 6F, 8F). Dans l'ensemble, ces résultats suggèrent que PGC-1 peut réguler l'inflammasome NLRP3 via la modulation de la libération d'ADNmt, les ROS mitochondriales/le stress oxydatif et le TNFAIP3.
Service de soutien de Wecistanche - Le plus grand exportateur de cistanche en Chine :
E-mail :wallence.suen@wecistanche.com
Whatsapp/Tél :+86 15292862950
Achetez pour plus de détails sur les spécifications :
https://www.xjcistanche.com/cistanche-shop


